Reference
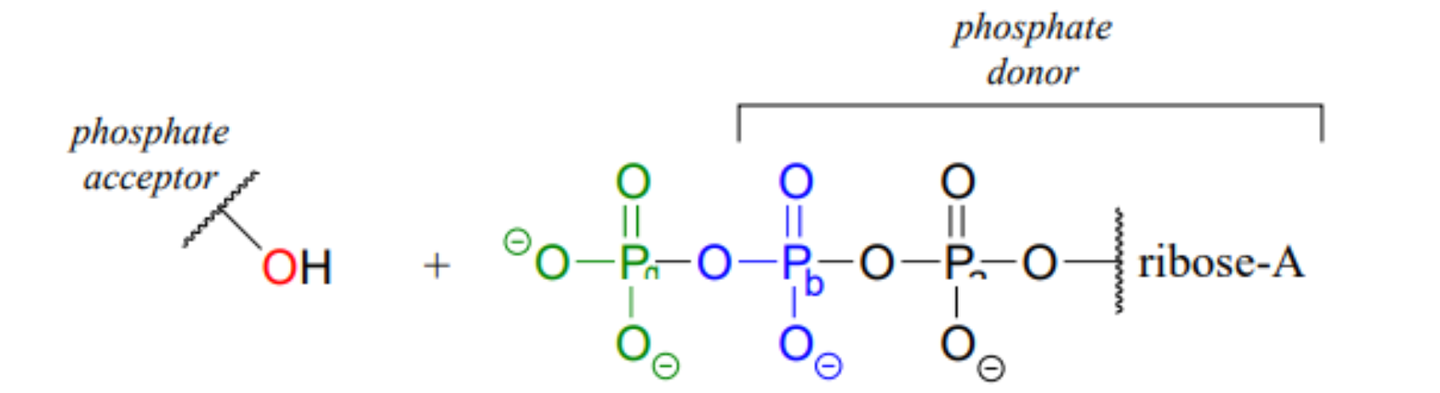
ATP和-OH反应过程:9.4: ATP, The Principal Phosphate Group Donor
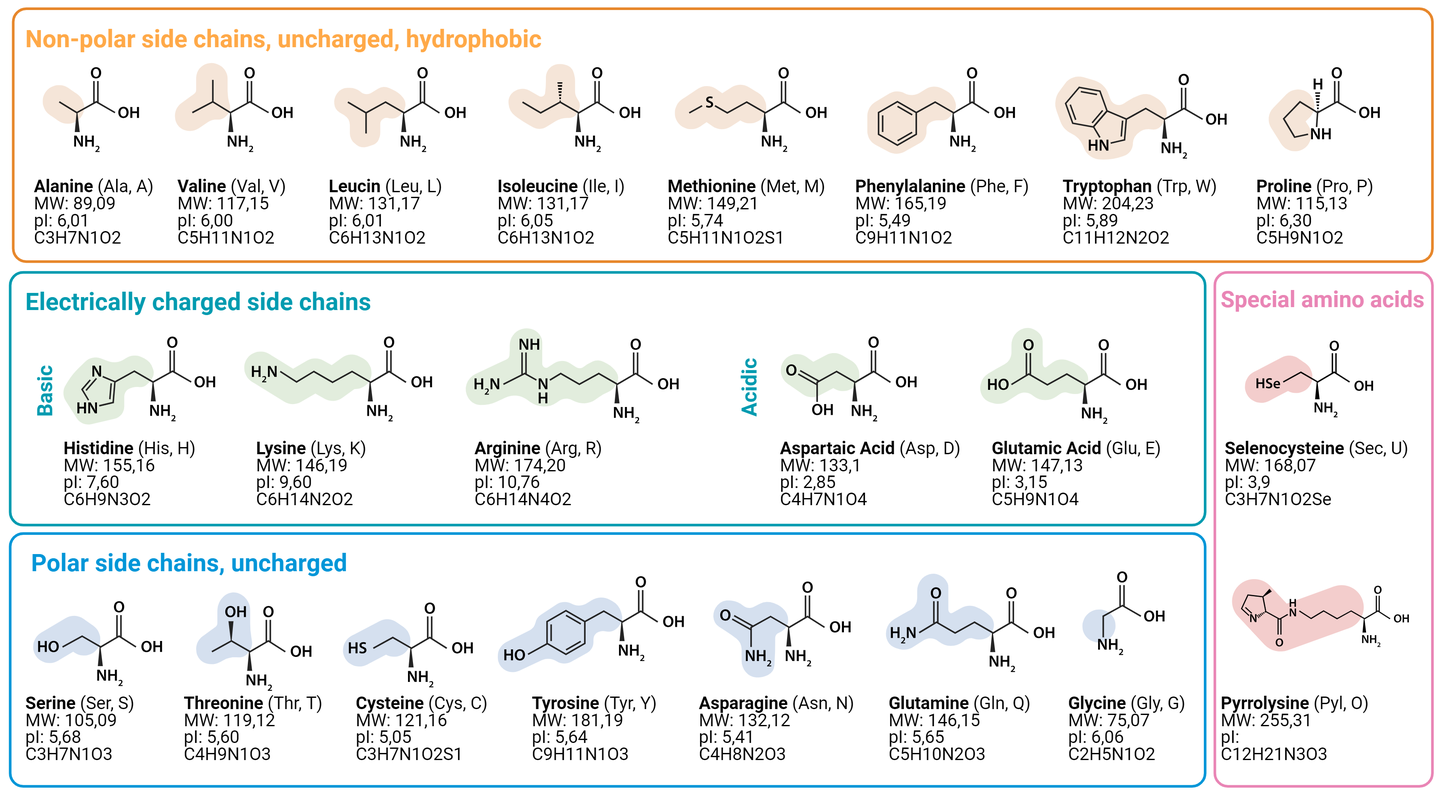
amino acid table: All About Amino Acids
kinase磷酸化过程:Mechanism and Catalytic Site Atlas
上面的网页还有别的mechanism的解释,网页:Mechanism and Catalytic Site Atlas
kinase结构:Just a moment...
药物抗性:https://pubs.acs.org/doi/10.1021/acs.jmedchem.4c00361
Amino acid table
添加图片注释,不超过 140 字(可选)
aa磷酸化&ATP
Serine, threonine, tyrosine, 特点是都带-OH
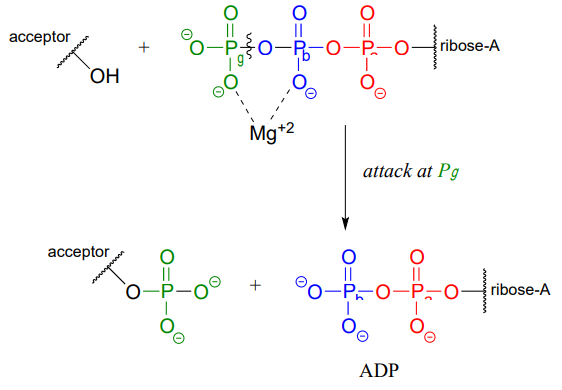
ATP里的三个P,根据离ribose的距离,依次为Pa(alpha), Pb(beta), P(gamma)
添加图片注释,不超过 140 字(可选)
夺取gamma的phosphate,就需要用Mg2+去中和最边上两个phosphate的负电,目的是不让phosphate排斥-OH的O
添加图片注释,不超过 140 字(可选)
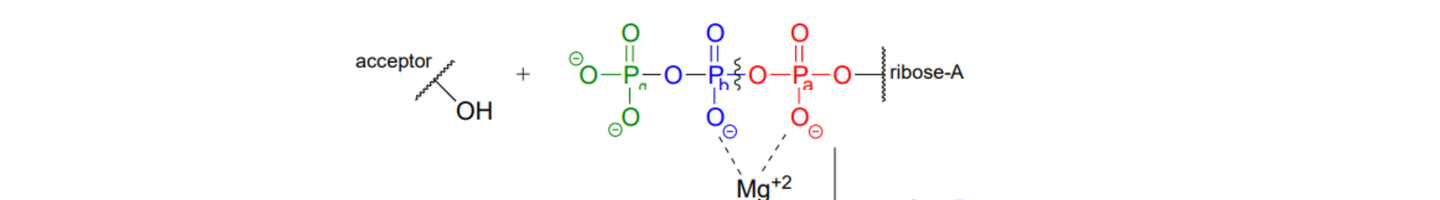
也可以attack beta 和 alpha
添加图片注释,不超过 140 字(可选)
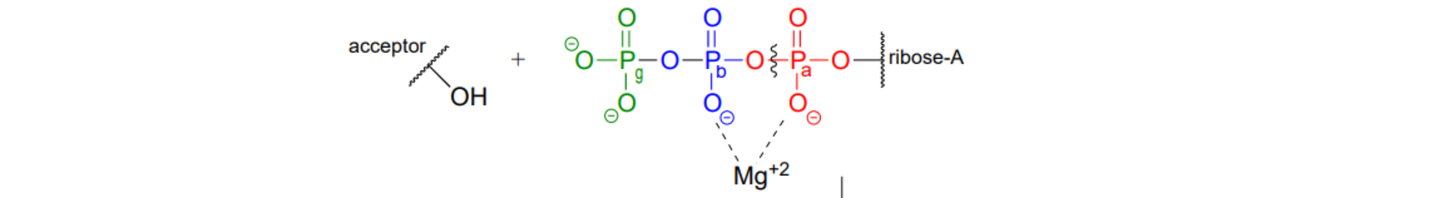
添加图片注释,不超过 140 字(可选)
Nucleophilic attack 亲核攻击
Lone pair,孤对电子
Lone pair(孤对电子)是指:氧、氮、氟等原子最外层上没有用于成键的电子对。
它们属于原子自己,不和别的原子共享电子。比如下面这个,外面4个点点,形成2个lone pair,然后和H的2个成键电子对
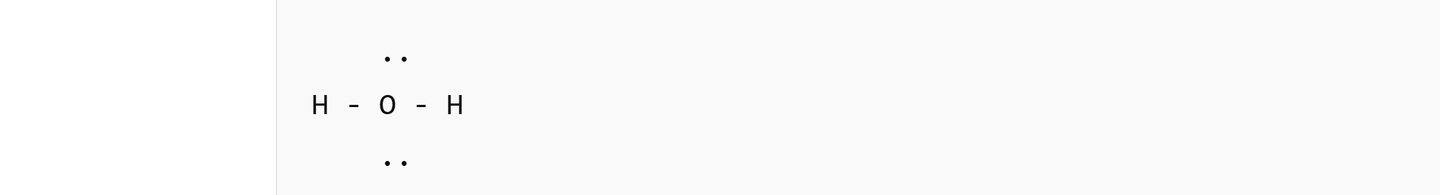
添加图片注释,不超过 140 字(可选)
所以对应的就是bonding pair(成键电子),两个原子共享电子对,形成covalent bond(共价键),比如O-H, C-O, C-H
-O(氧负离子,或者-OH中的氧)有孤对电子(lone pairs)。这些孤对电子上带着高电子密度(很多电子,电子云很密),可以主动去攻击电子不足(带正电)的原子,比如磷酸基里的P、或者碳正离子C⁺。
这种用自己的孤对电子去进攻、形成新键的行为,就叫亲核攻击(nucleophilic attack)。
为什么会攻击phosphate里的P?
在ATP里的phosphate(比如三磷酸腺苷ATP):
-
磷(P)和**四个氧(O)**相连。
-
其中有些氧通过P=O的双键连接,有些是P-O单键,有些O带负电(O⁻)。
-
磷本身整体上是中性的(即P并没有真正带正电荷)。
**但是!**即使没有形式上的正电荷,磷的电子是相对“贫电子”的(电子密度不足)。
因为:
-
氧(O)的电负性(electronegativity)比磷(P)大很多。
-
电子更偏向氧,被氧拉走了。
-
结果,虽然整体是中性,但磷局部变成了一个“电子密度低”的原子。
-
也就是,它在化学反应中,表现得像是“带一点正电性质”,容易被亲核试剂攻击。
这种情况我们叫做局部正电荷(partial positive charge, δ⁺),用这个符号表示 δ⁺(不是正式+1,是一点点正电倾向)。
过程
-
准备阶段: -OH基团中的氧(O)上有孤对电子,可以向电子贫乏的磷(P)发起攻击。 磷酸的磷原子有一个P=O双键和三个P-O单键,其中有些氧是带负电荷的。
-
亲核攻击(Nucleophilic attack): -OH的氧原子用它的一对孤对电子,攻击磷原子,在P和O之间形成一个新的P-O键。
-
过渡态形成(Transition State): 此时,磷周围暂时会连接5个原子(五配位过渡态,五角双锥结构,称为pentavalent intermediate)。 由于五配位结构不稳定,系统要尽快分解。
-
键断裂(Leaving group departure): 为了缓解过渡态的高能量状态,原先与磷连接的一个P-O键会断裂,通常是把一个氧原子连带一部分磷酸基团**作为离去基(leaving group)**甩出去。
-
氧氢断裂同步(Proton transfer): 同时,为了维持中性或负电性平衡,原本-OH中的O-H键也会断裂。 氧带走成键电子(所以变成O⁻),而氢则作为H⁺(质子)离开。 有时候,这个H⁺会被周围的溶剂(比如水)或者附近的碱性基团(如酶里的氨基酸残基)接走。
-
最终产物(Product formation): 最终,新的P-O键形成,连接了原来-OH所在的分子和原来的磷酸。 另一个部分(比如一个磷酸或焦磷酸)作为离去基释放出来。 整个反应是一个**磷酸酯化(phosphorylation)或者磷酸转移(phosphate transfer)**过程。
kinase 结构
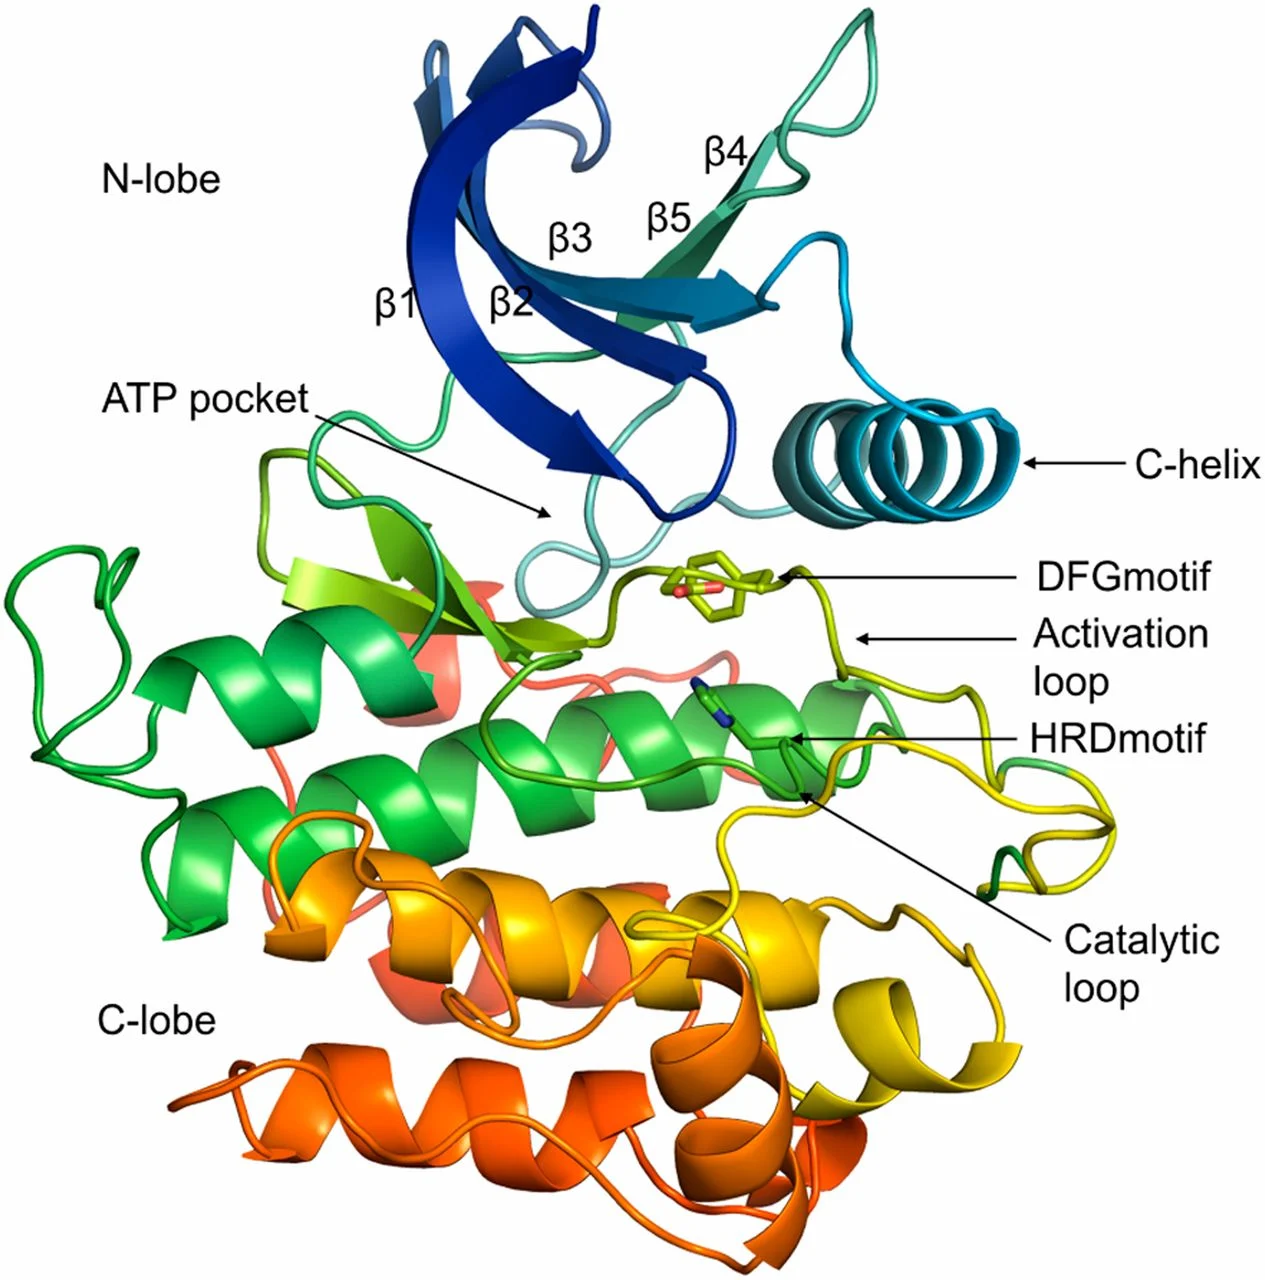
Defining a new nomenclature for the structures of active and inactive kinases
kinase domain整体上可以分为两个部分,上面接近N terminal的叫N-lobe, 主要由beta-sheet构成,下面接近C terminal的叫C-lobe,由alphaC-helix螺旋状蛋白构成。
我一般喜欢让C-helix对着我,放在右侧,就类似图中的位置。
另外从视觉上来讲,b5在b4的前面,是因为b4的序列在前面,只不过空间上比b5靠后。
aC-helix两端连接的部分和β的名字相关,αC–β3 loop 和αC–β4 loop。很多药物突变会发生在αC–β4 loop。
P+1 loop
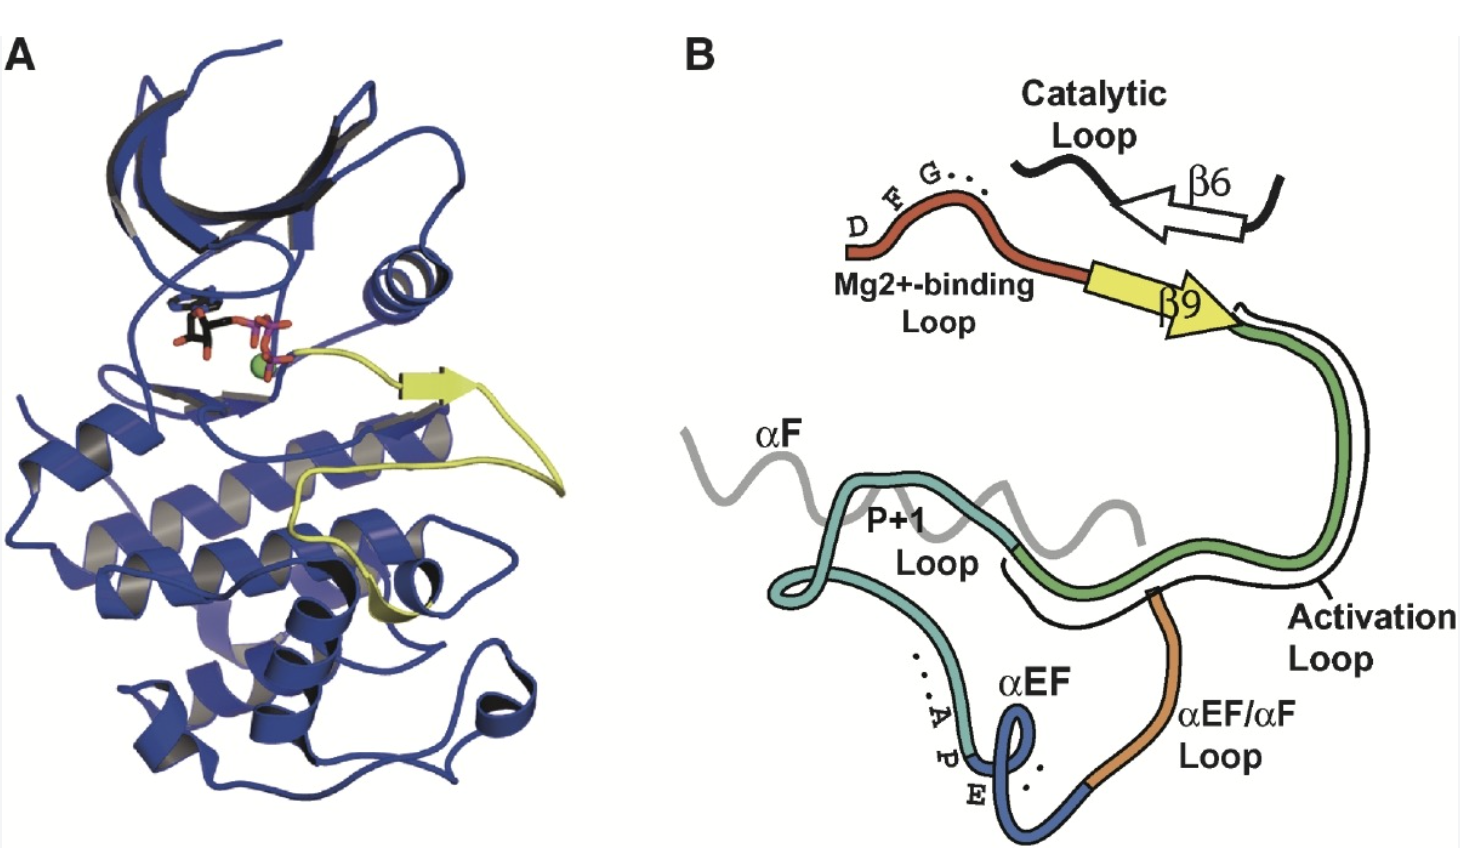
决定substrate peptide position 0 acceptor的性质
ATP pocket
然后左侧上下两个部分连接的位置是ATP pocket。很多covalent药物小分子喜欢target这个位置,一般会carry acrylamide, 也就是C=O C=C。里面的C beta,就是双键右侧的C,会和附近的cysteine的-S产生共价键,S-C。
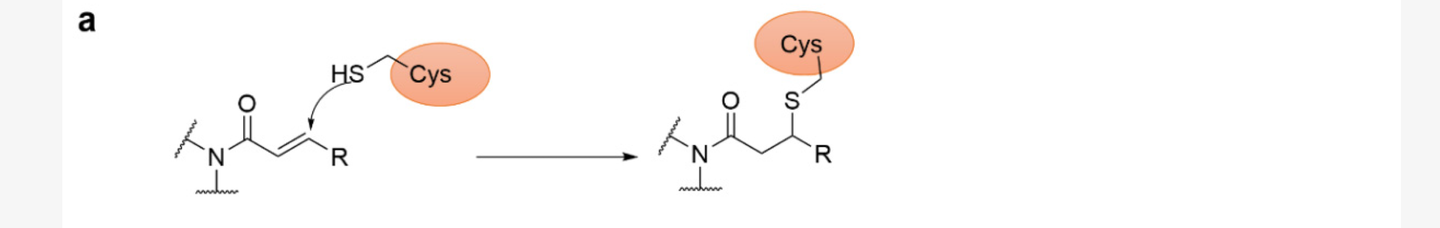
添加图片注释,不超过 140 字(可选)
ATP pocket里,包括hinge上游的gate keeper里,T790M 就在这里,这个突变可以让ATP更好的结合,还会阻碍第一代EGFR药(gefitinib/erlotinib)的结合,从而使得靶向药无效,是最common的acquired resistance ,但是osimertinib可以overcome this resistance。
K in aC-helix
-
在未激活状态,它处于“αC-out”构象(偏移、向外旋出)
-
在激活状态,它变成“αC-in”构象(向内靠近活性位点)
一些磷酸酶在激活之后,aC-helix会由外往里走。
比如EGFR激活之后,EGFR activator 把EGFR receiver的aC-helix往里推,然后就会就会让beta-3上的lysine(K)和aC-helix上的E(glutamate)形成盐键。在这里,EGFR的A loop并不是作为必须条件激活EGFR的。
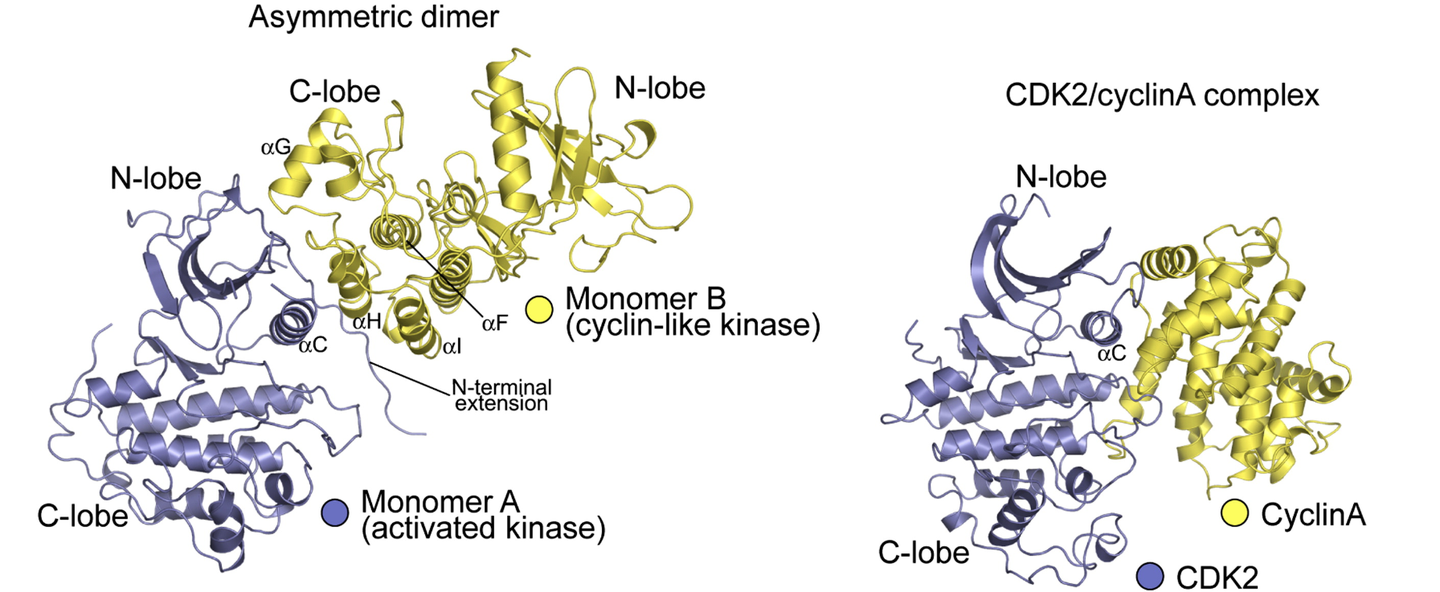
pdb: 2GS2, An Allosteric Mechanism for Activation of the Kinase Domain of Epidermal Growth Factor Receptor
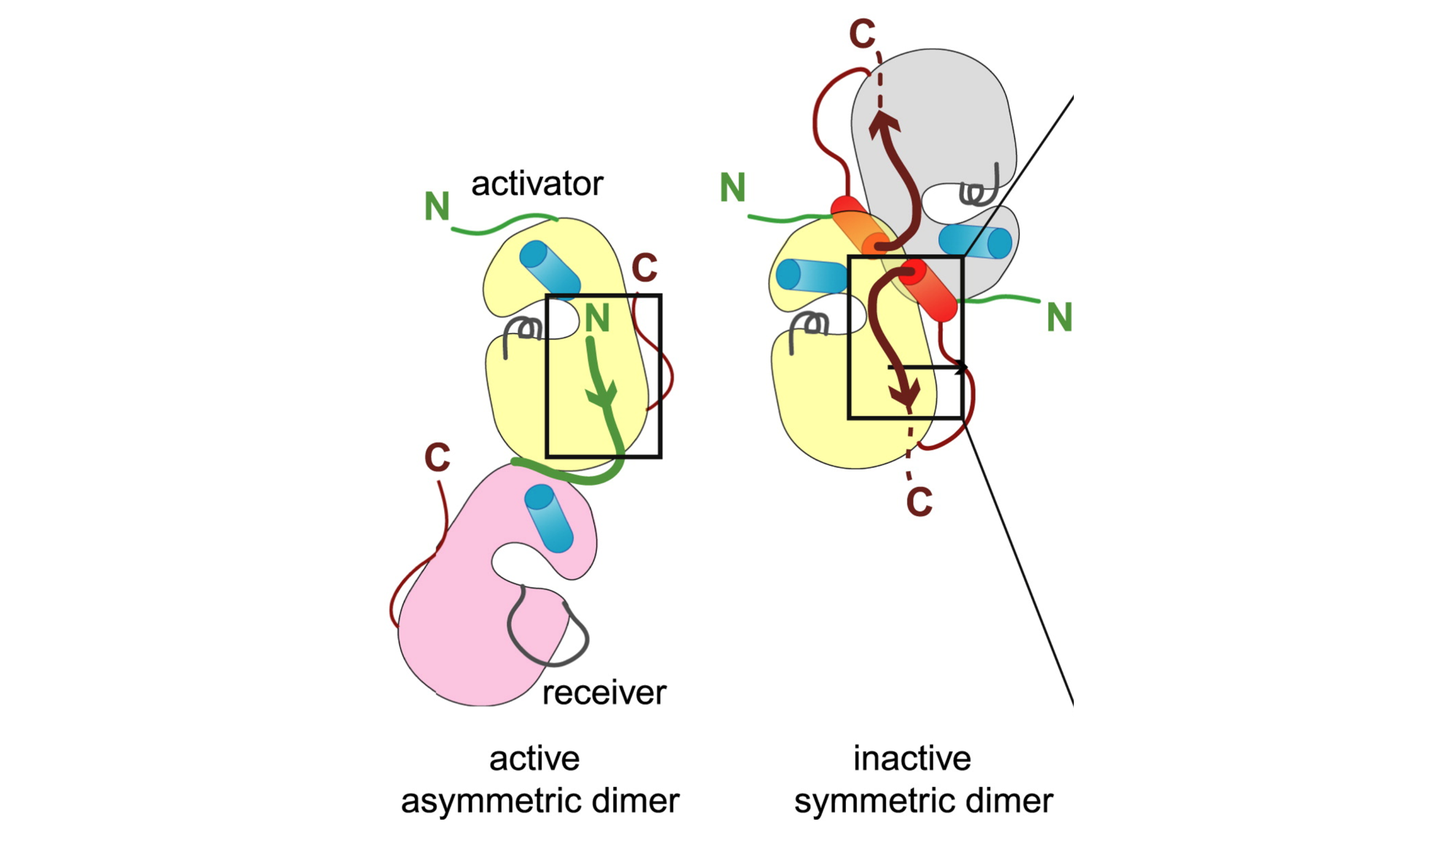
2009 John Kuriyan: Mechanism for Activation of the EGF Receptor Catalytic Domain by the Juxtamembrane Segment
Juxtamembrane
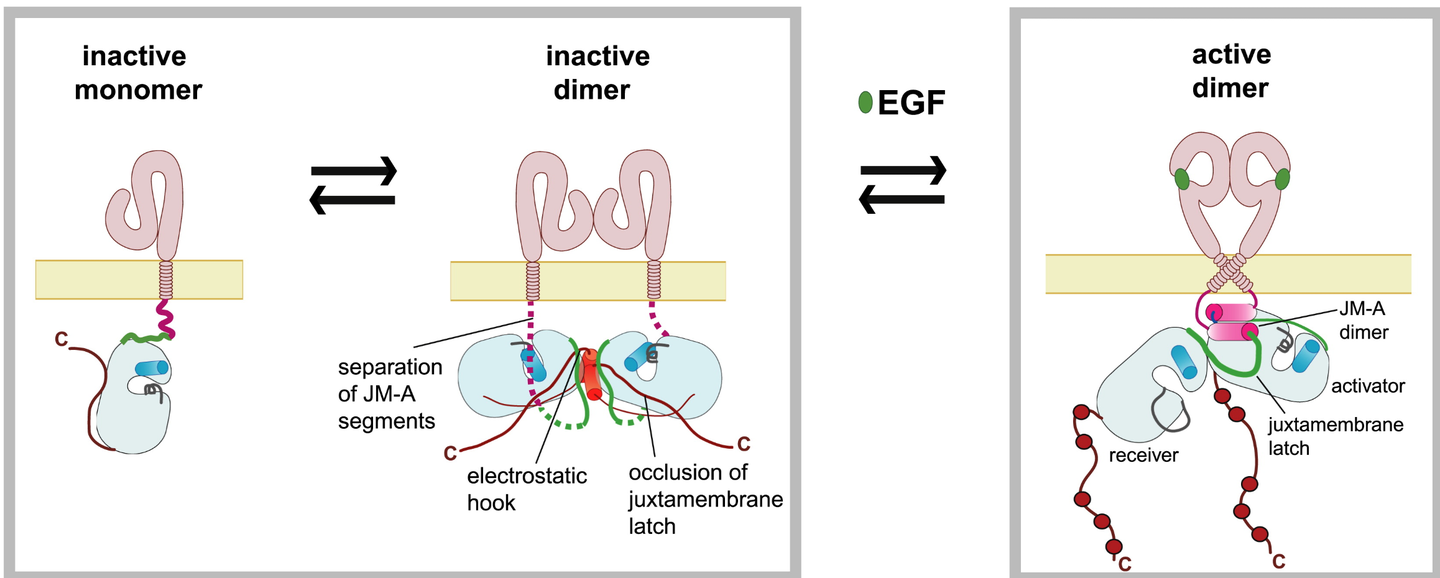
添加图片注释,不超过 140 字(可选)
D in DFG motif in activation loop
DFG motif是由氨基酸D,F,G构成,在activation loop里面(activation loop的开头,结尾是APE motif),DFG的D是用来hold住Mg2+,中和ATP中phosphate里O的负电帮助s/t/y的OH抢夺磷酸基团。
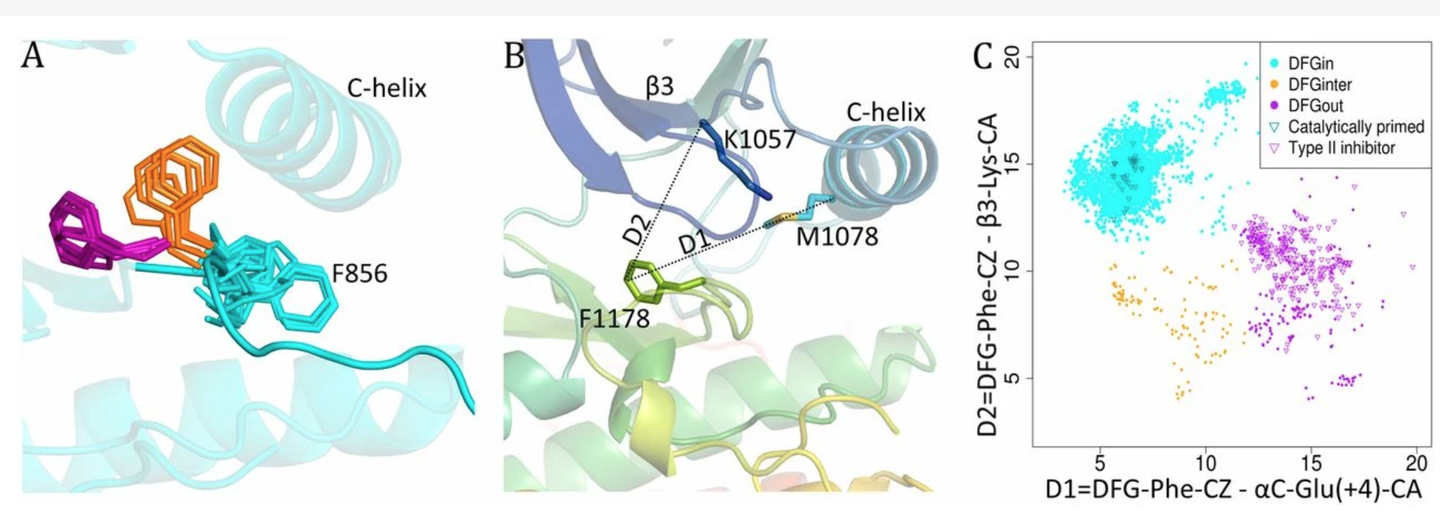
DFG in 就是active (in 是需要hold住Mg2+),DFG out就是inactive。
添加图片注释,不超过 140 字(可选)
上面蓝色是in,紫红是out,中间的橙色是intermediate。
in离C-helix的近,所以D1小(图C x轴),但是离b3-K远,所以D2大(图C y轴)。反之就是out。
DFG-in: activation loop 在里面,activate state,更容易hold住Mg2+。这个状态由activation loop的磷酸化来控制。BRAF V600E就是发生在activation loop上的,使得BRAF持续active, E(glutamate) COO-带有负电荷,模仿磷酸化的状态,并且左右两侧是T599 和S602。EGFR 的L858R 也在a loop上,不过R带正电荷,可以和附近酸性的氨基酸形成氢键或者salt bridge,使得a loop固定在了activation (in)的位置,于是就持续active了。
DFG-out: activation loop在外面,inactive state
D in HRD motif in catalytic loop
catalytic loop里的HRD motif,是由氨基酸H,R,D构成,D用来抢夺substrate里s/t/y 的-OH中的H。帮助O去attack phosphate里的P
P loop
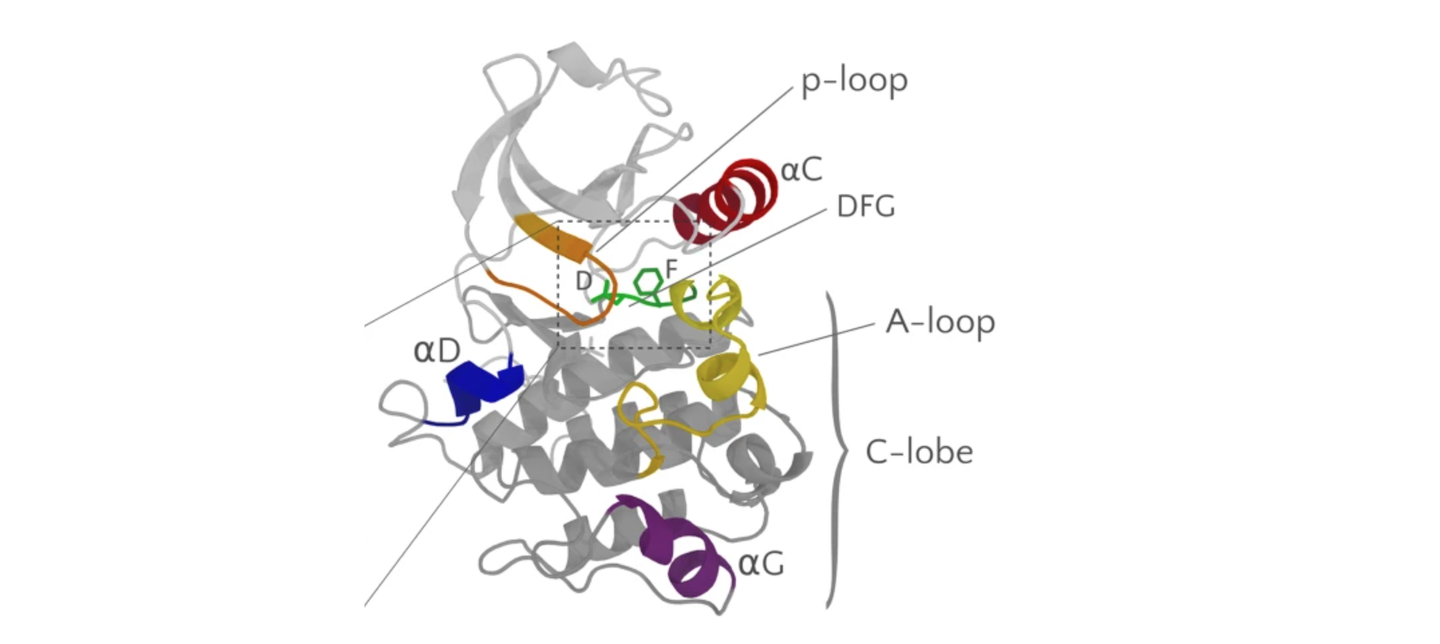
beta-1 和beta2相连的部分是p-loop,就是下图中橘黄色的部分。
添加图片注释,不超过 140 字(可选)
K in VAIK motif in beta3 sheet
beta sheet-3 上有一个VAIK motif, [V/I]-A-[V/I]-K (valine/isoleucine)-alanine-()-lysine。 这里面的K就是beta3-lysine。
beta3-lysine -NH3+(带正电)可以和aC-helix上的E (gluatmate) -COO-(带负电)形成salt bridge,稳定ATP binding pocket的结构。
同时,beta3-lysine -NH3+可以和ATP中的phosphate形成氢键。这里注意,aC-helix上的E不会直接和ATP接触,而是通过和lysine的NH3 interact来稳定lysine的结构,好帮助lysine更好的fix ATP。
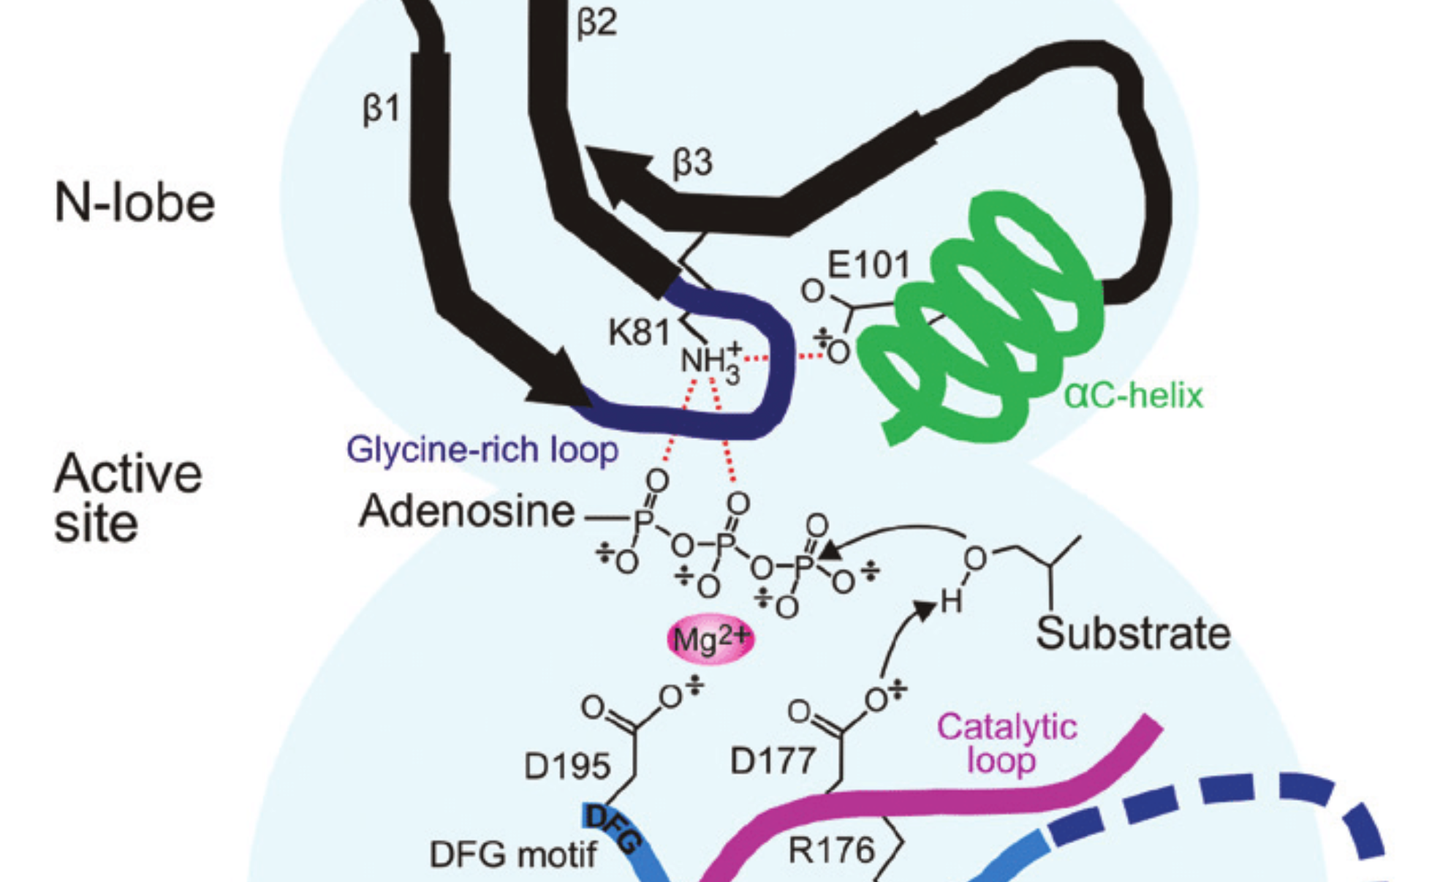
EGFR K745 VAIK E762 ILDEA
HER2 K753 VAIK E770 DEAY
inactive的时候,aC上的E就不会冲着里面,而是向着别的方向。
substrate site
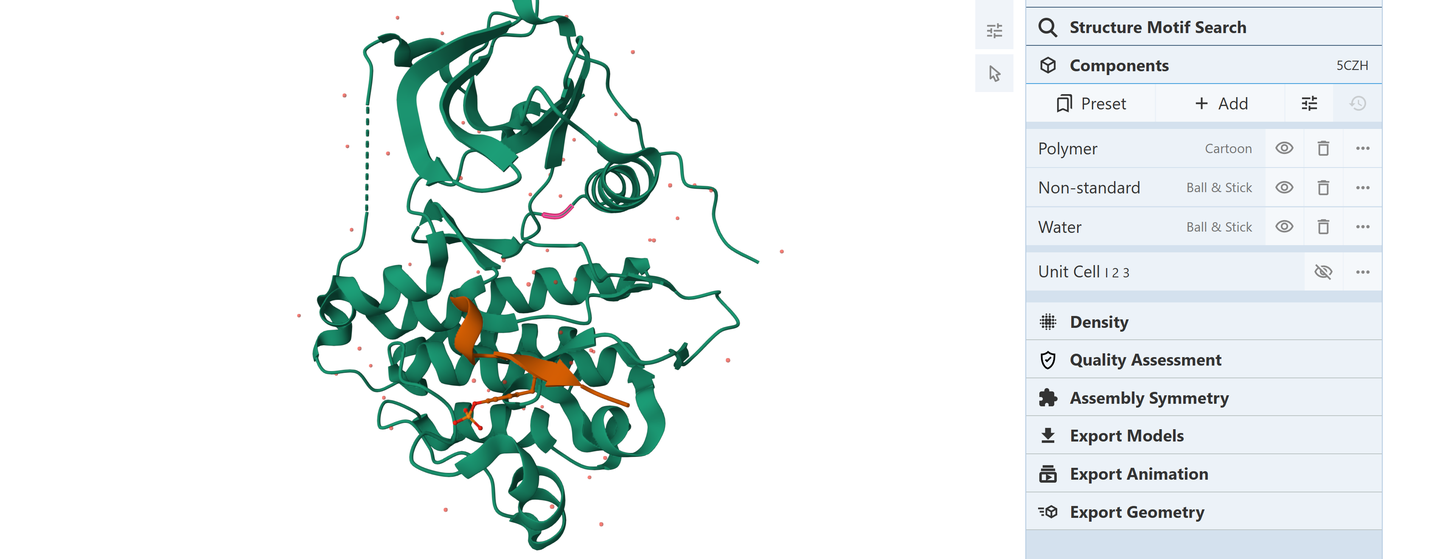
substrate的地方,example是5czh, 橘黄色的部分就是substrate peptide,伸出来的是phospho-tyrosine
添加图片注释,不超过 140 字(可选)
另一个例子,可以看到ATP和substrate很近,传达磷酸基团。
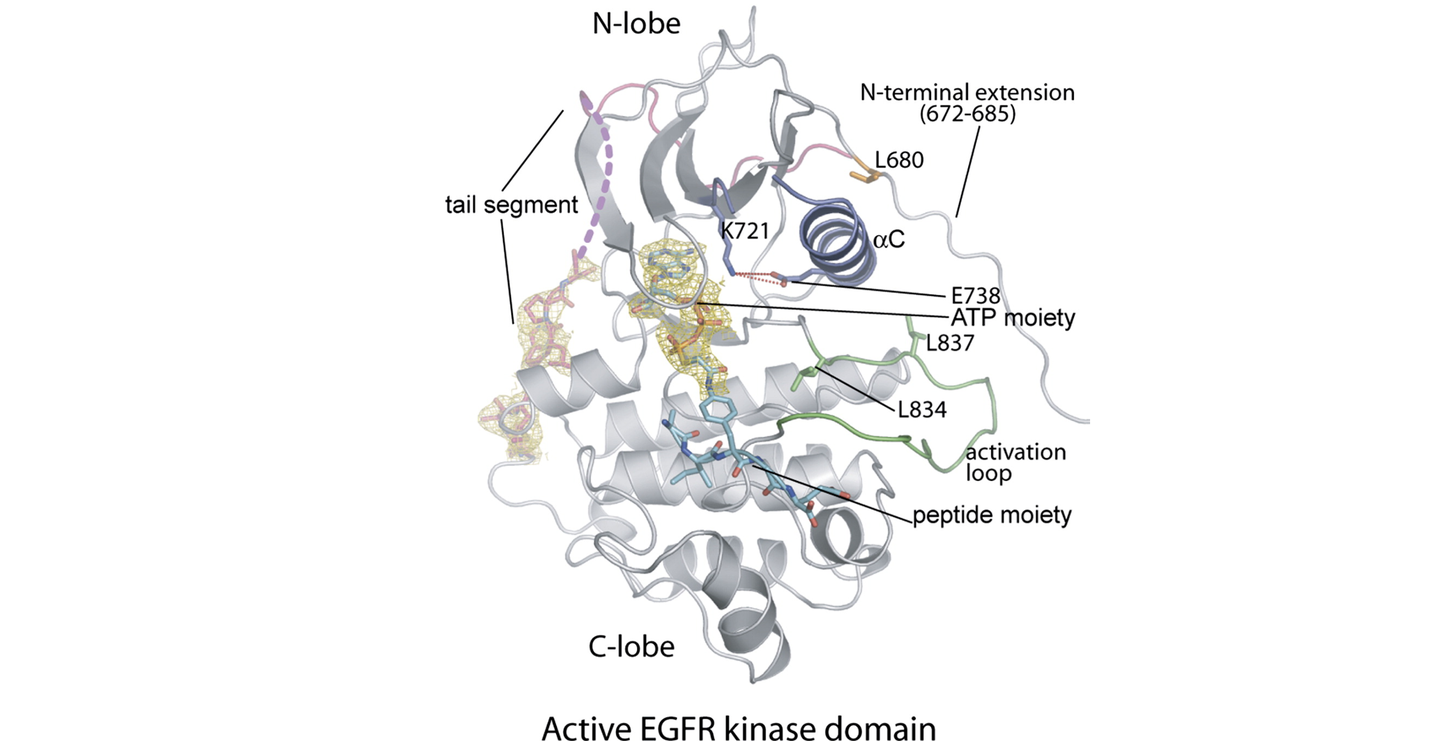
https://www.cell.com/fulltext/S0092-8674%2806%2900584-8
pseudo kinase
pseudo kinase(PK)很多时候就是缺少这些motif里的一些氨基酸,但并不意味着它们没有功能。
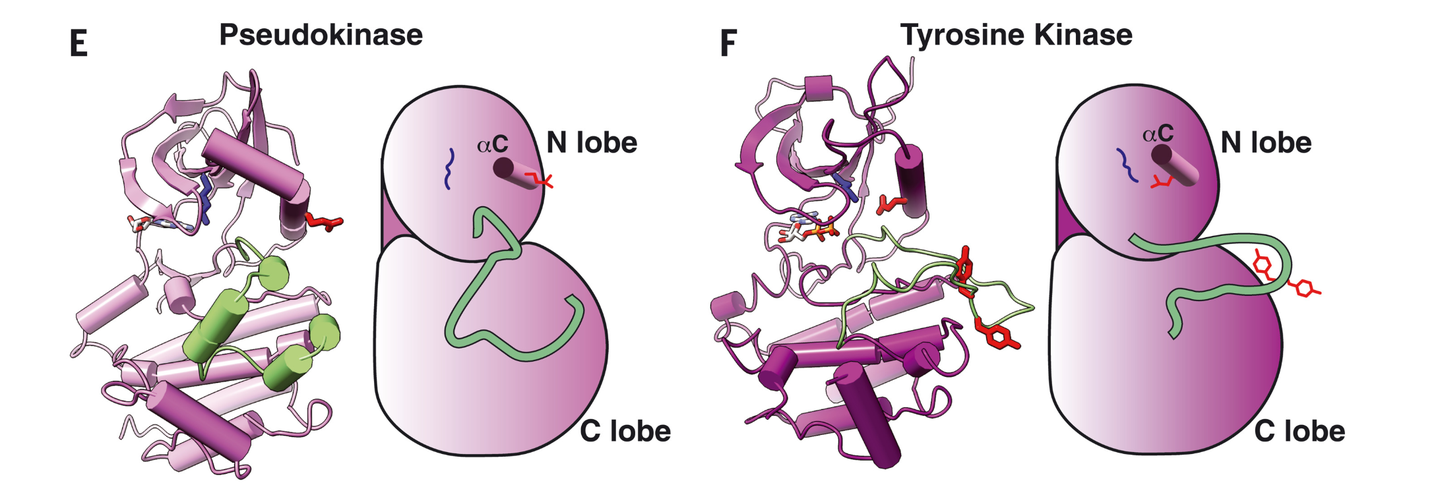
添加图片注释,不超过 140 字(可选)
比如Jak1蛋白有两个kinase domain,一个是PK,一个是function的TK。
PK可以形成dimer,然后激活TK 。如果没有PK,JAK1单独在细胞表达会一直处于激活状态,但当PK-TK作为一个整体表达的时候,JAK1会autoinhibit,所以PK是类似一个开关来调节JAK1的激活状态。
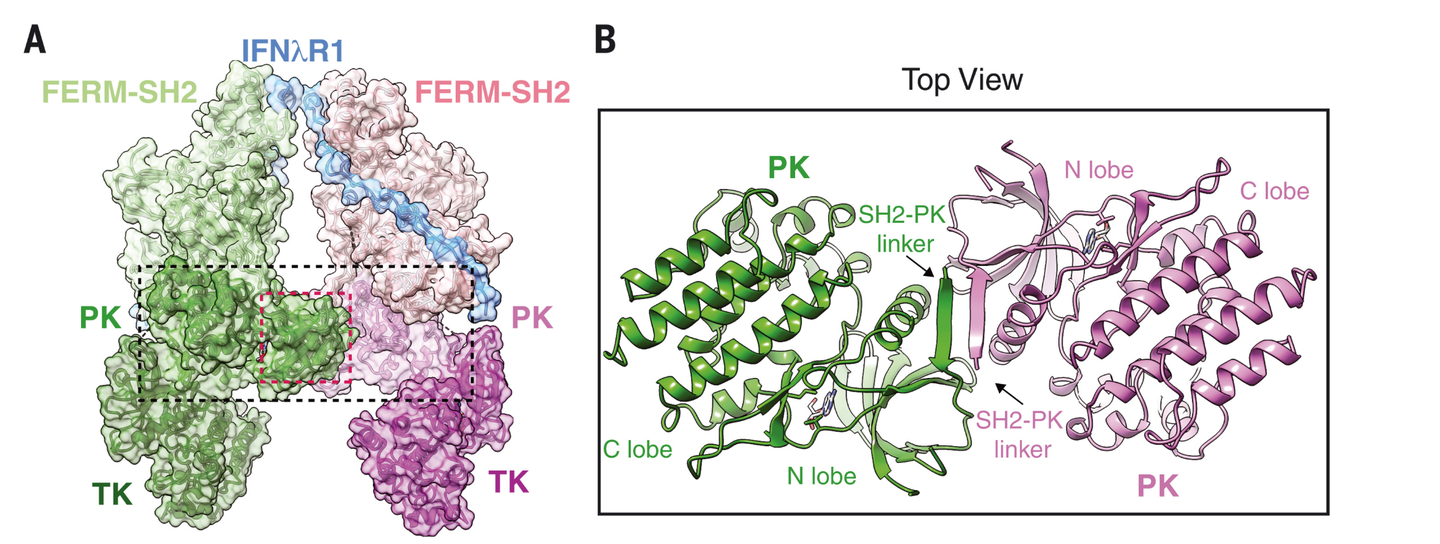
Structure of a Janus kinase cytokine receptor complex reveals the basis for dimeric activation
图里的PK是头对头,如果上面的linker发生oncogenic突变,突变会促进dimer,使其一直处于激活状态。
C terminal 尾巴
有些磷酸酶有很长的尾巴,在C-lobe后面,比如EGFR,尾巴可以被磷酸化,然后吸引含有SH2,SH3,PTB domain的蛋白来bind,然后激活后面的路径。
比如下面这个例子。EGFR磷酸化尾部 Y1068被磷酸化后,Grb2通过 SH2 域结合,Grb2 的两个 SH3 域像“手”一样把 SOS 拉过来,SOS 是一个 Ras GEF,它在膜上接近 Ras,使 Ras-GDP → Ras-GTP。
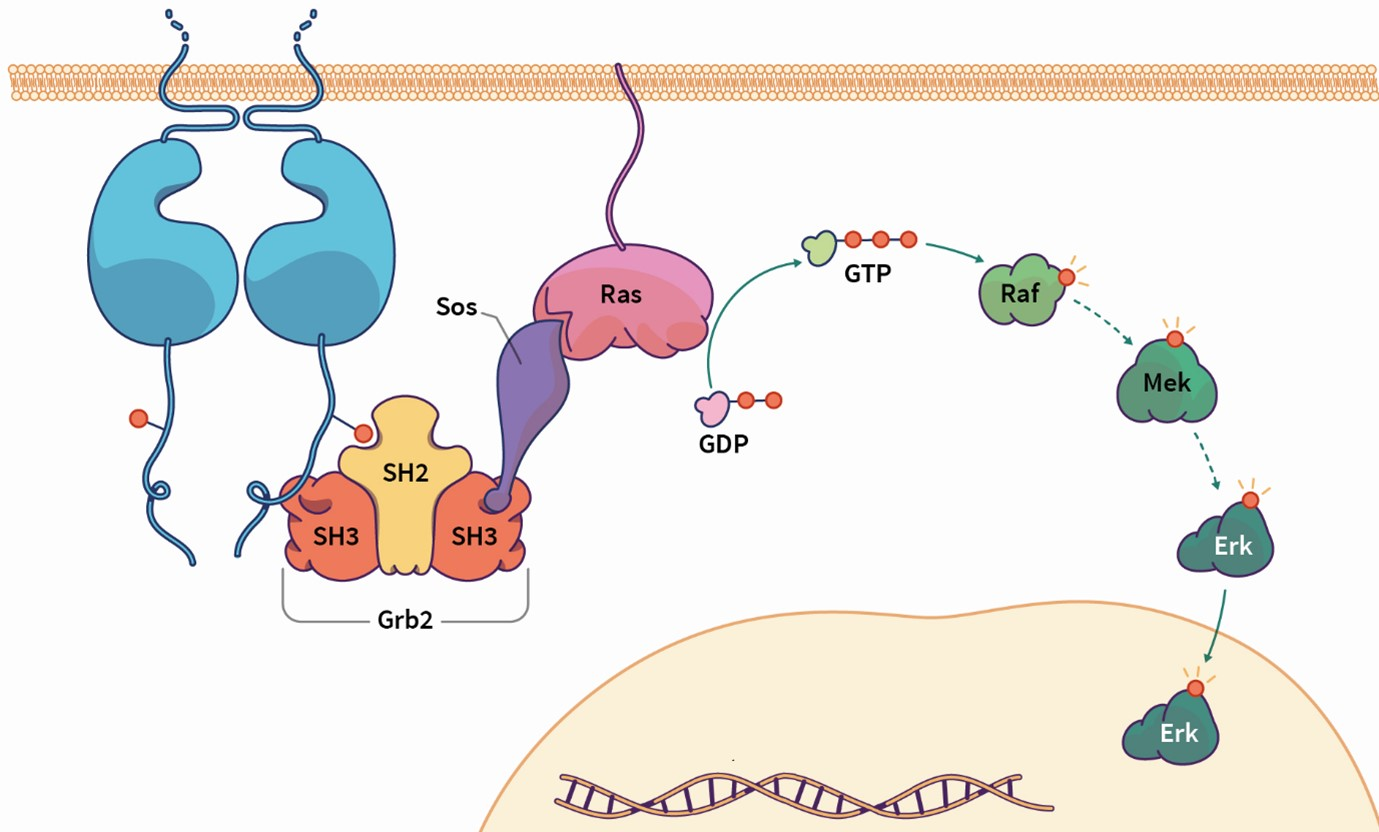
The Grb2 isoform, Grb3-3, negatively regulates Ras activation
药物
type 1 inhibitor
针对ATP pocket,通常是active form,DFGin
type 2 inhibitor
target allosteric pocket,在aC helix下面,通常是inactive form,DFGout
药物抗性
exon20 insertion
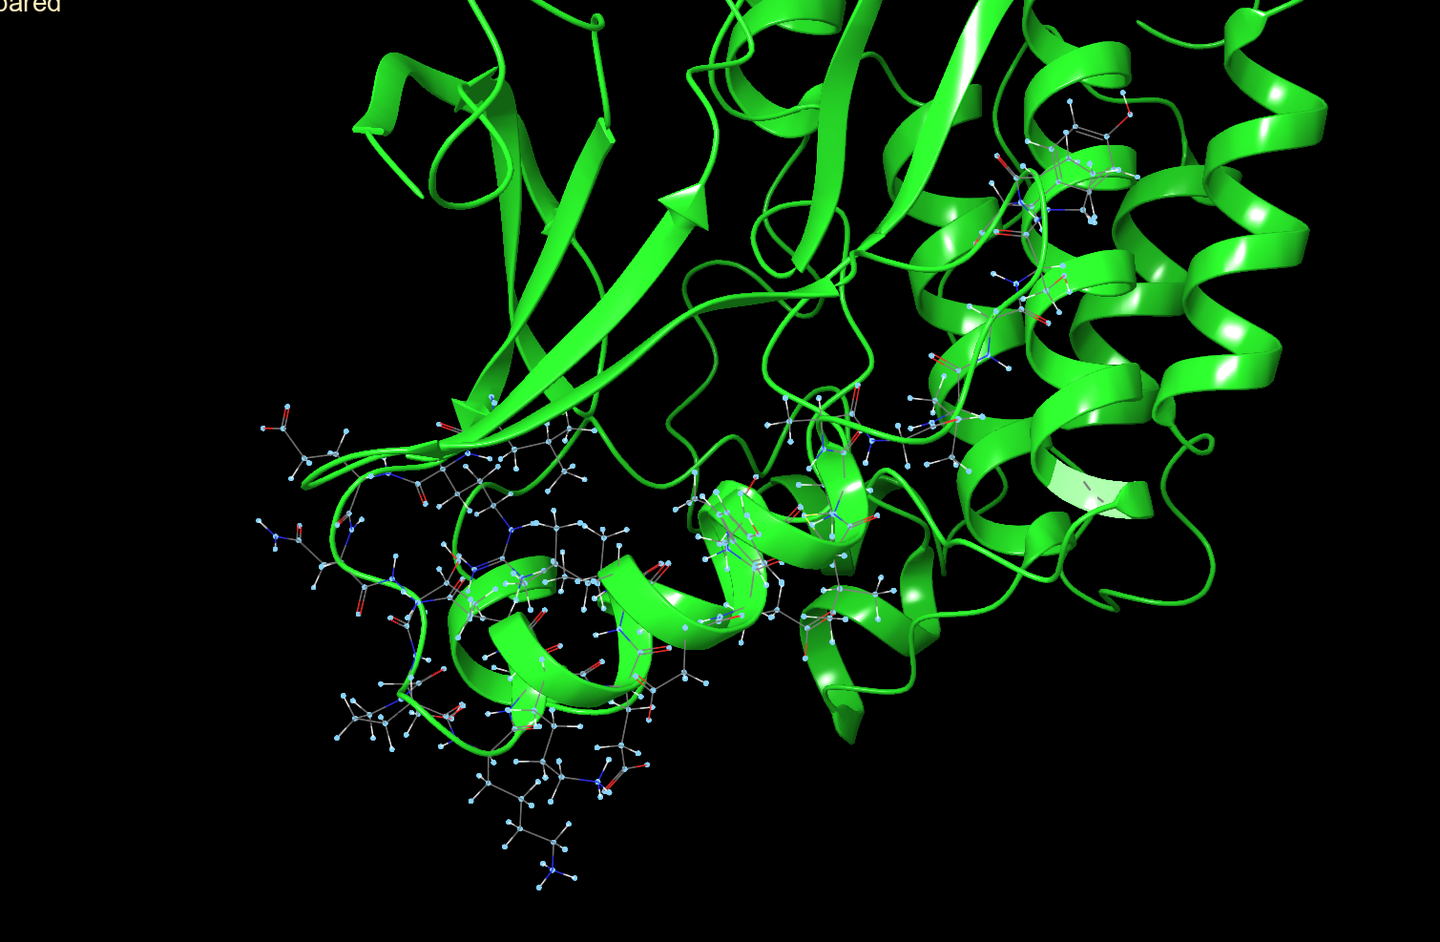
her2
就在aC-helix前后的部分。以her2作为例子,最常见的是Y772_A775dup, 然后是G776delinsVC。它可以让HER2持续激活,是因为它能maintain activation的状态。
gate keeper - hinge - solvent front
gate keeper (GK)就是图中紫色的部分,hinge的上面,常见的氨基酸是M,T,L,F。
solvent front 在hinge(连接N lobe和C lobe的地方)的后半部分,挨着C lobe的部分。它一般有4个氨基酸组成的motif (SF),其中SF-3(G)是最common的。
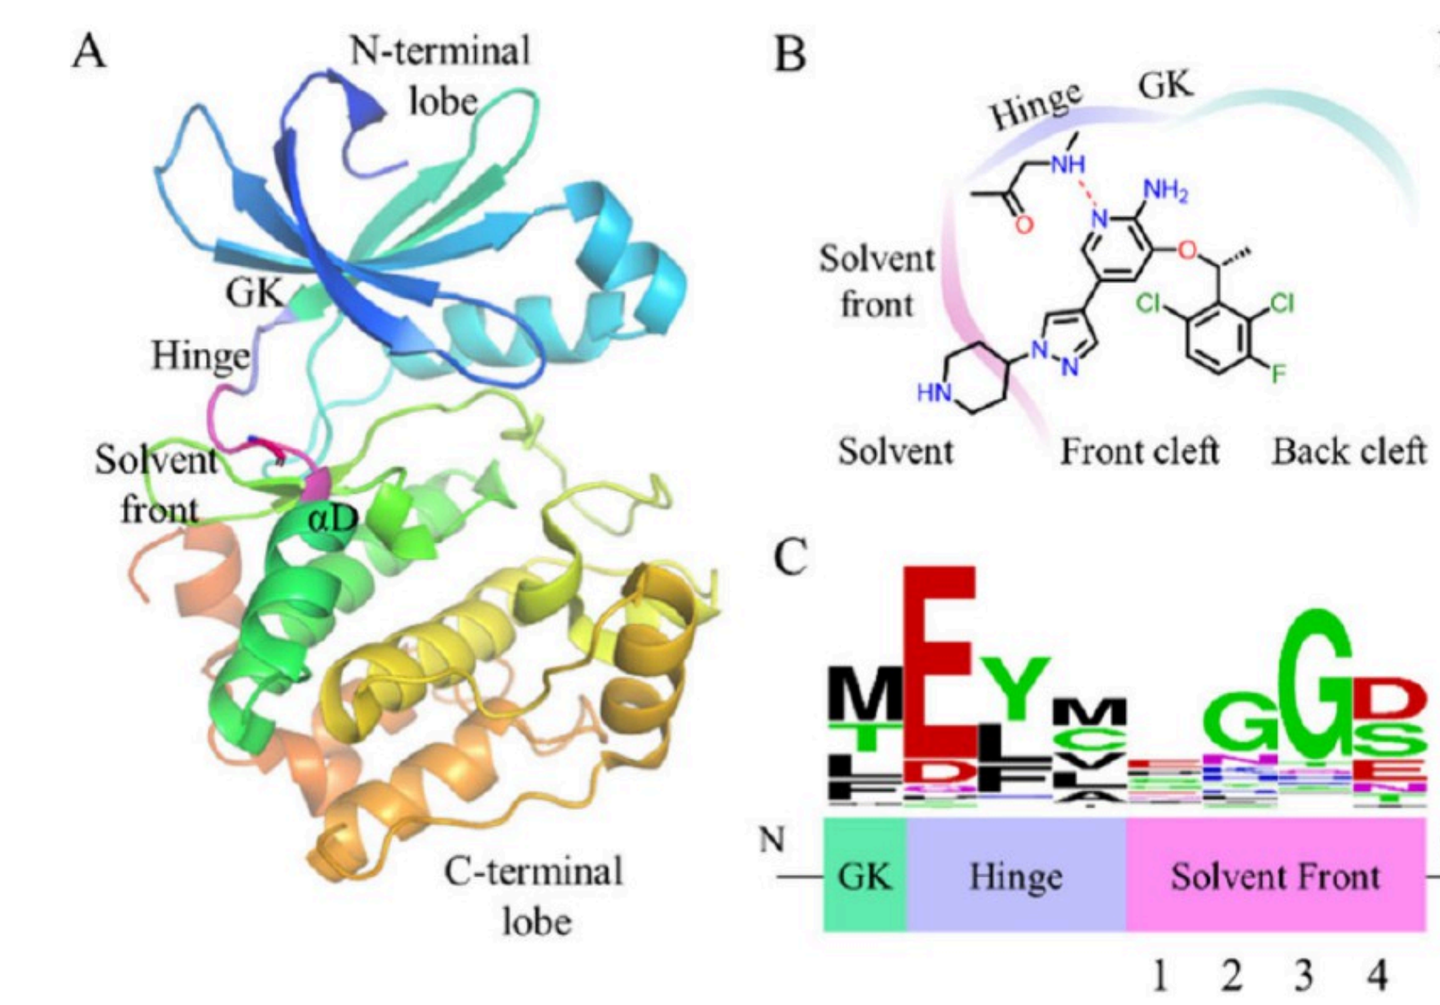
添加图片注释,不超过 140 字(可选)
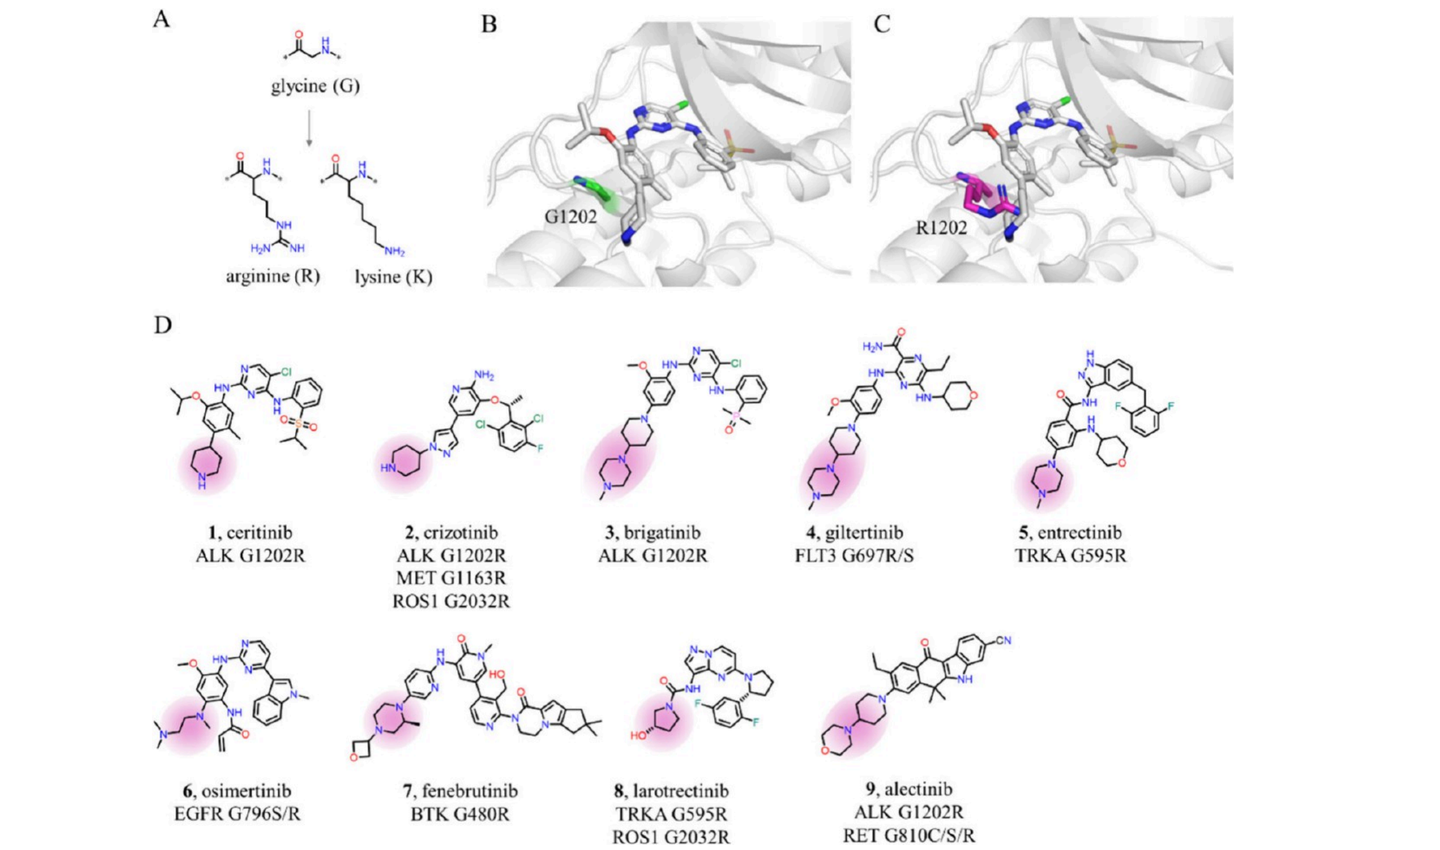
大部分的磷酸酶在SF-3的地方都是G(下图)。最常见的solvent-front突变就是G to X。G是氨基酸里最短最简单的,换成别的氨基酸会导致空间上的冲突(steric clash)。比如上图的B
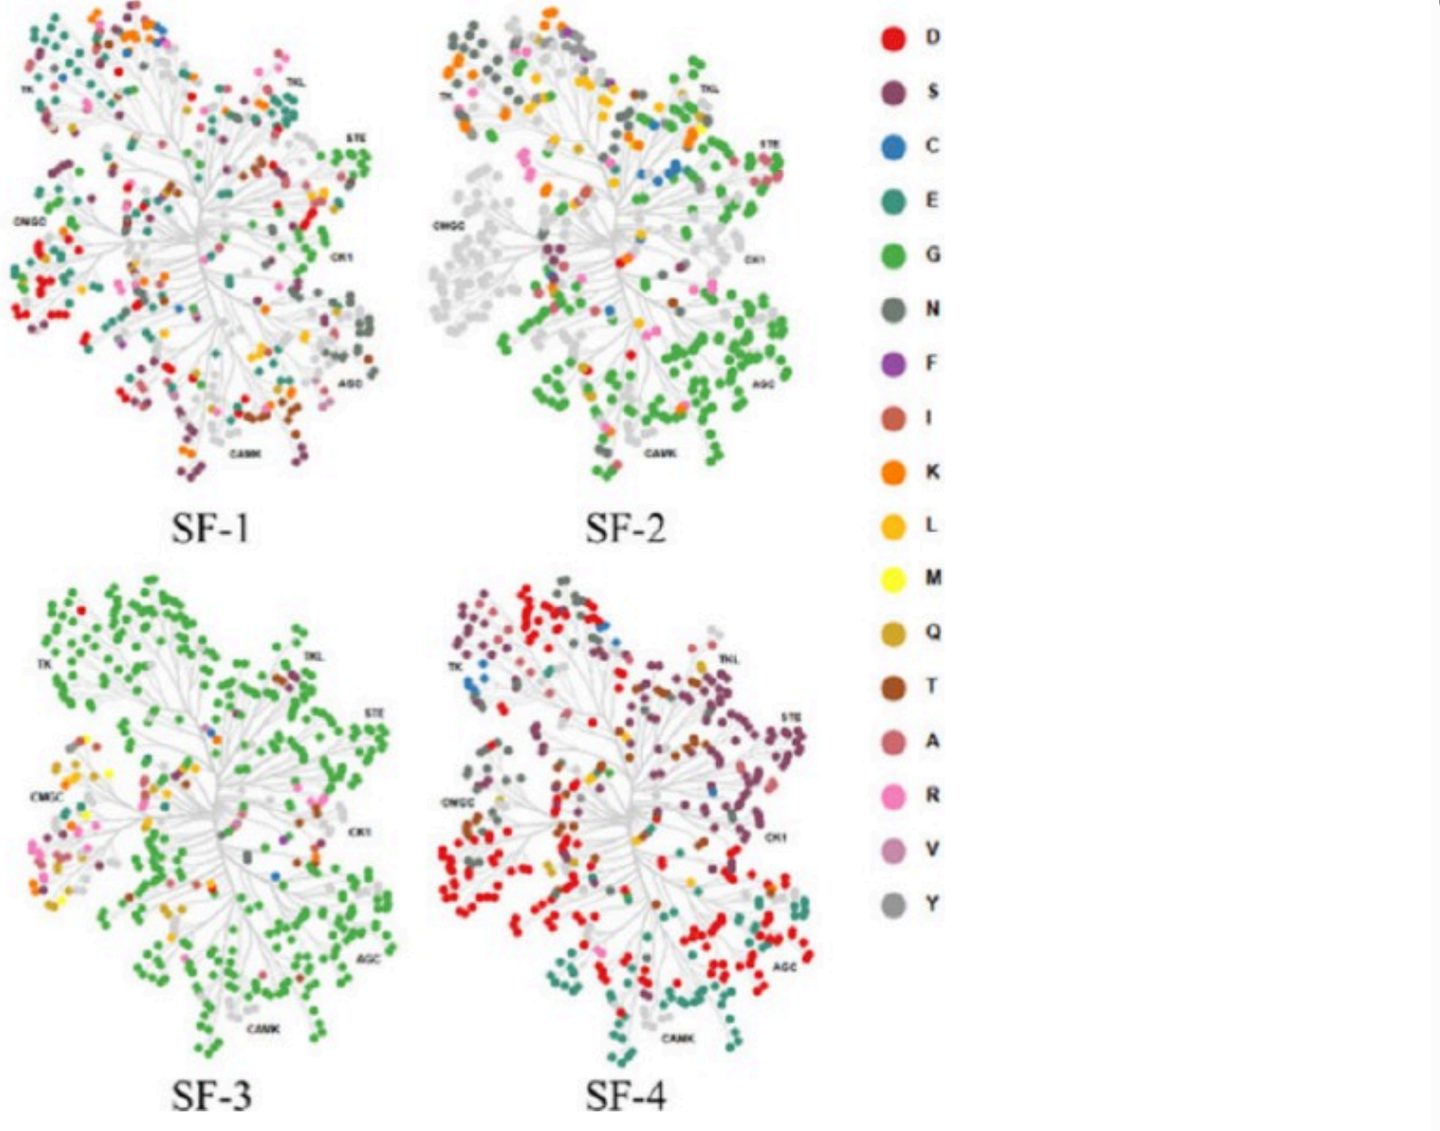
添加图片注释,不超过 140 字(可选)
下面是一些磷酸酶的solvent front。大部分的SF3都是G,所以可以提前预测药物的抗性。
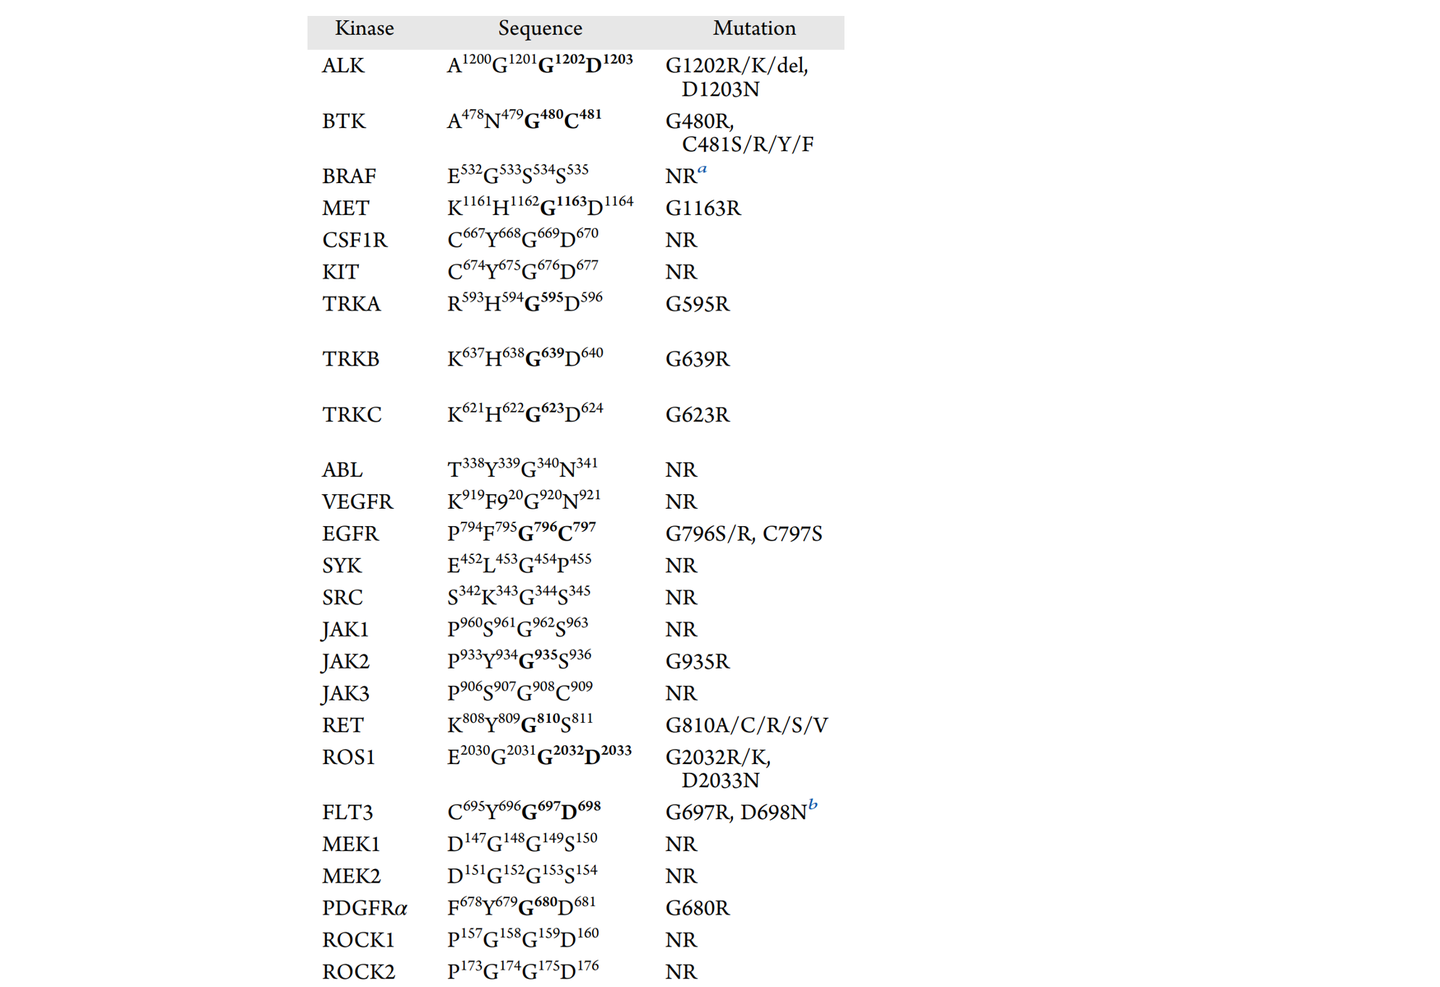
添加图片注释,不超过 140 字(可选)
SF3-G空间冲突
很多药会在某个集团与solvent front中G的突变产生冲突。
添加图片注释,不超过 140 字(可选)
SF4空间冲突
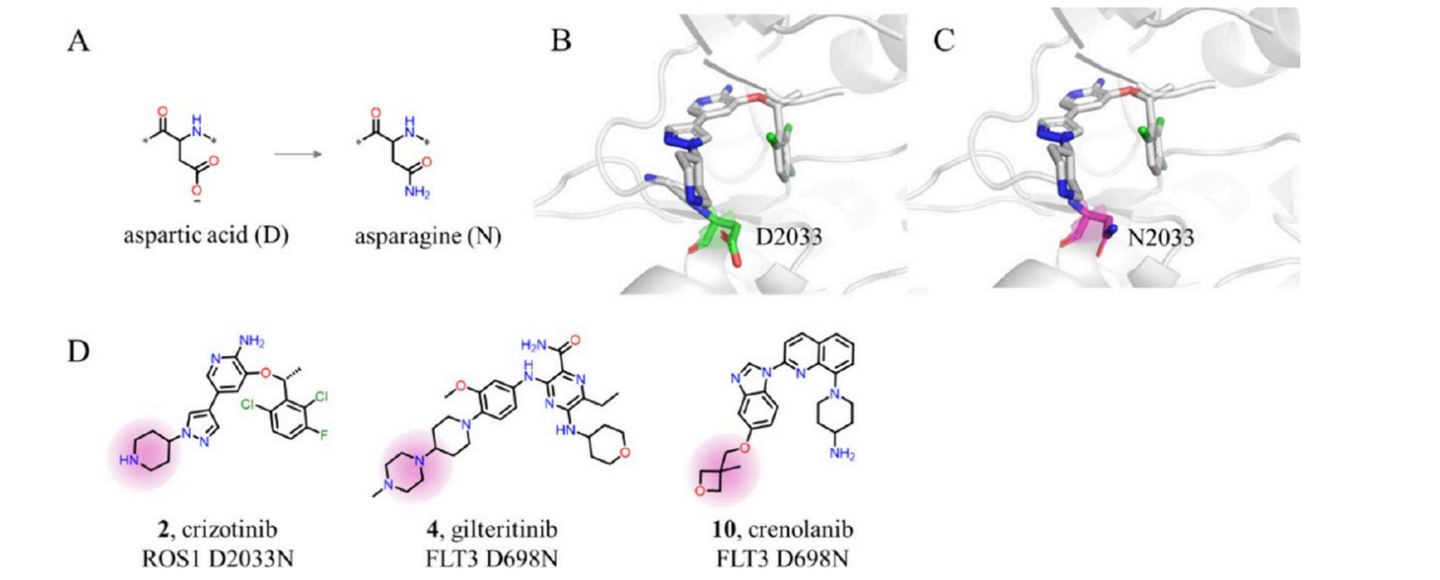
添加图片注释,不超过 140 字(可选)
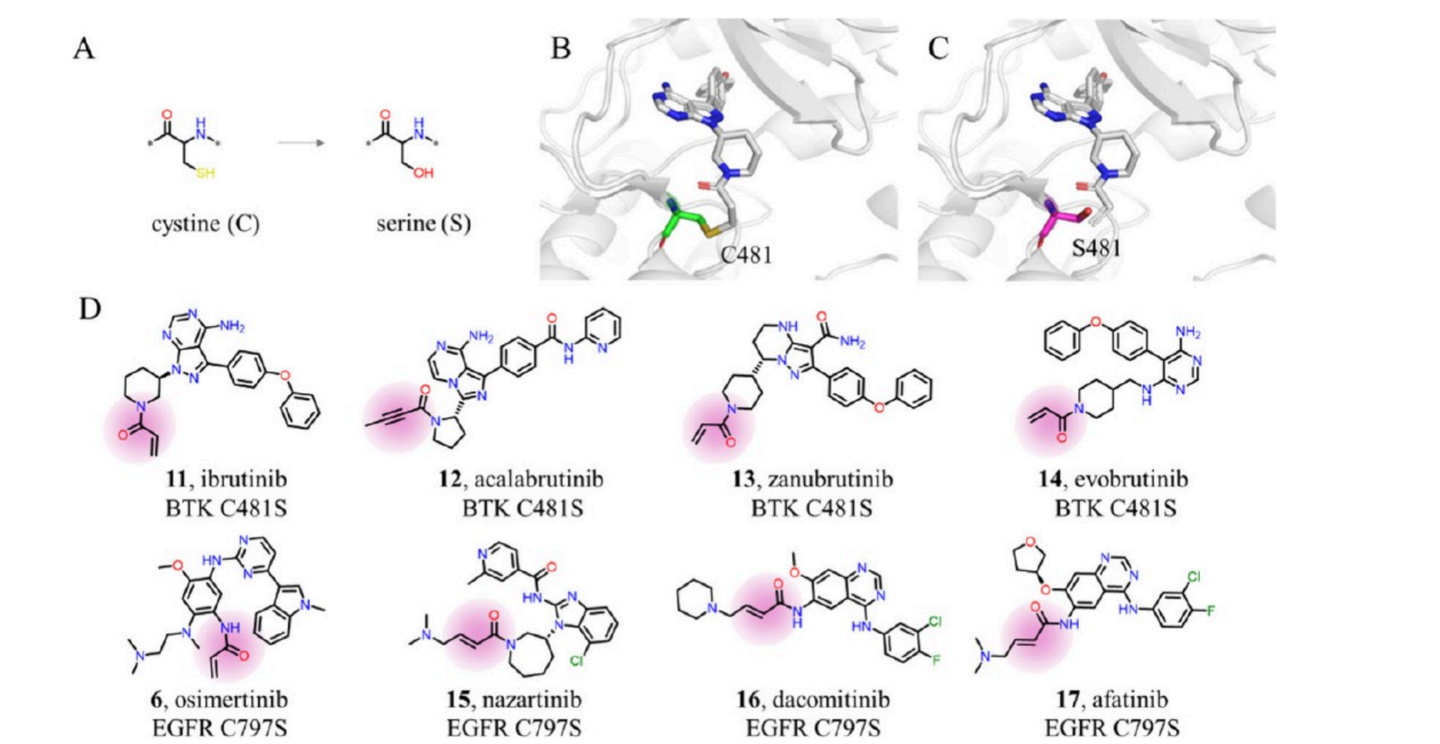
SF4-C突变
形成共价键的C的突变。注意SF-4, BTK, EGFR, ITK, BLK是cysteine,可以和共价药物产生共价键。但大部分的病人会在treatment后产生cysteine的突变。突变一般倾向于一个less reactive serine,或者变成一个更大的氨基酸,比如R,F,Y。下面highlight的官能团是可以形成covalent bond的。
添加图片注释,不超过 140 字(可选)
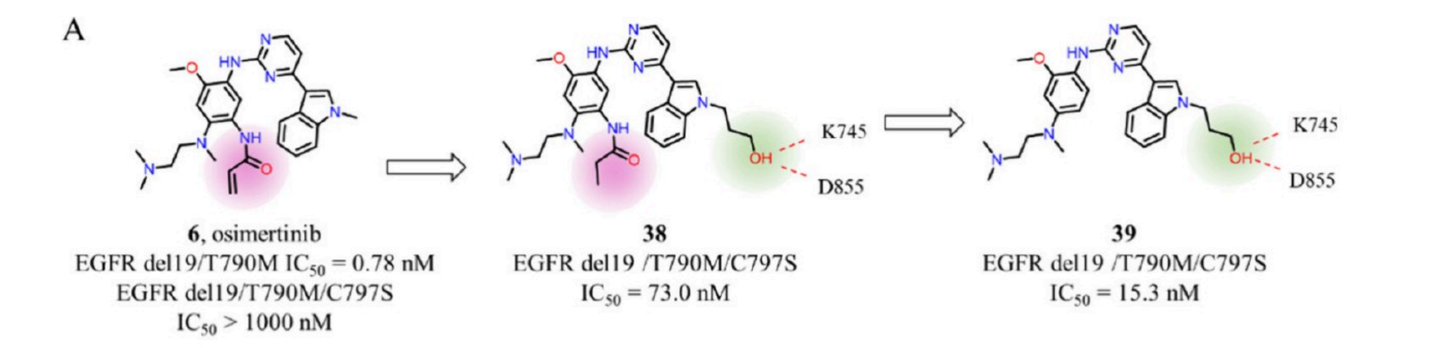
抗性的策略
- 从共价药物变成非共价药物。然后添加一些新的官能团,新的的interaction
添加图片注释,不超过 140 字(可选)
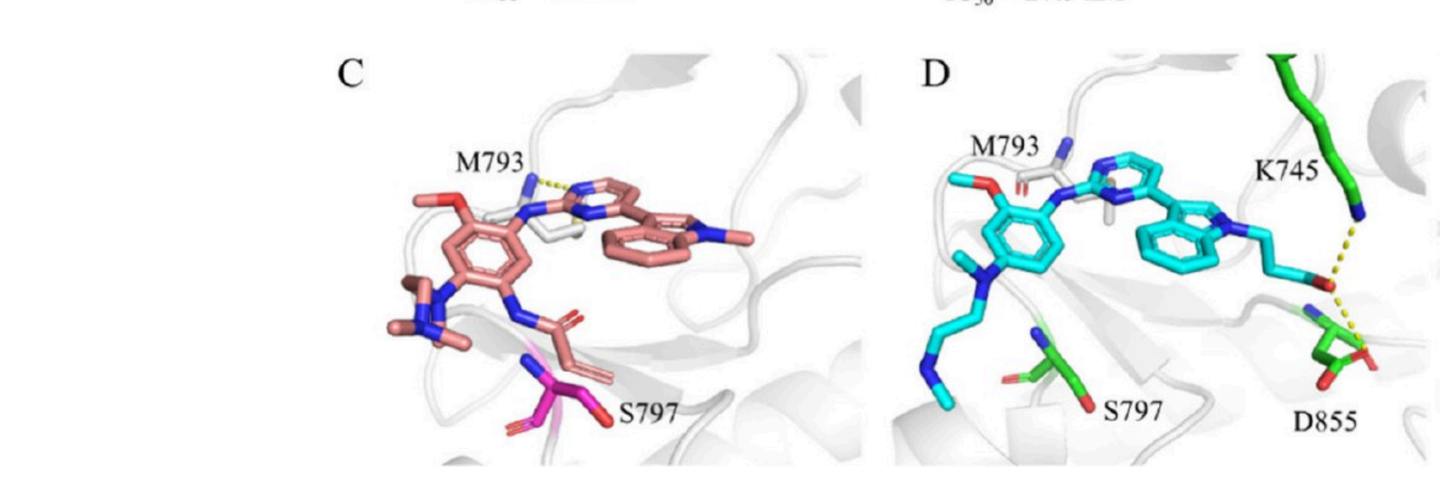
添加图片注释,不超过 140 字(可选)
- 改变药的官能团,使其变小
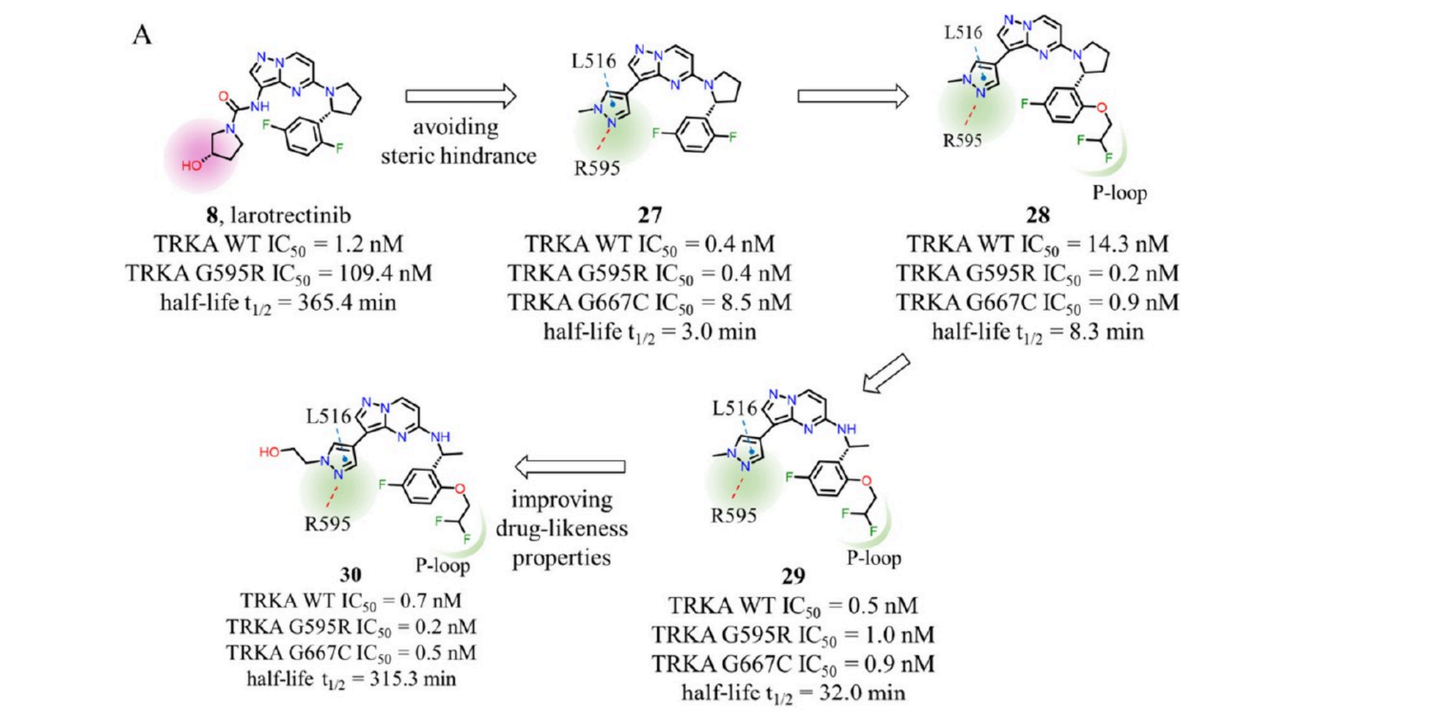
添加图片注释,不超过 140 字(可选)
- 变成大环。下面的crizotinib和lorlatinib都是由BlossomHill Therapeutics的Jean(崔景荣)发明的。
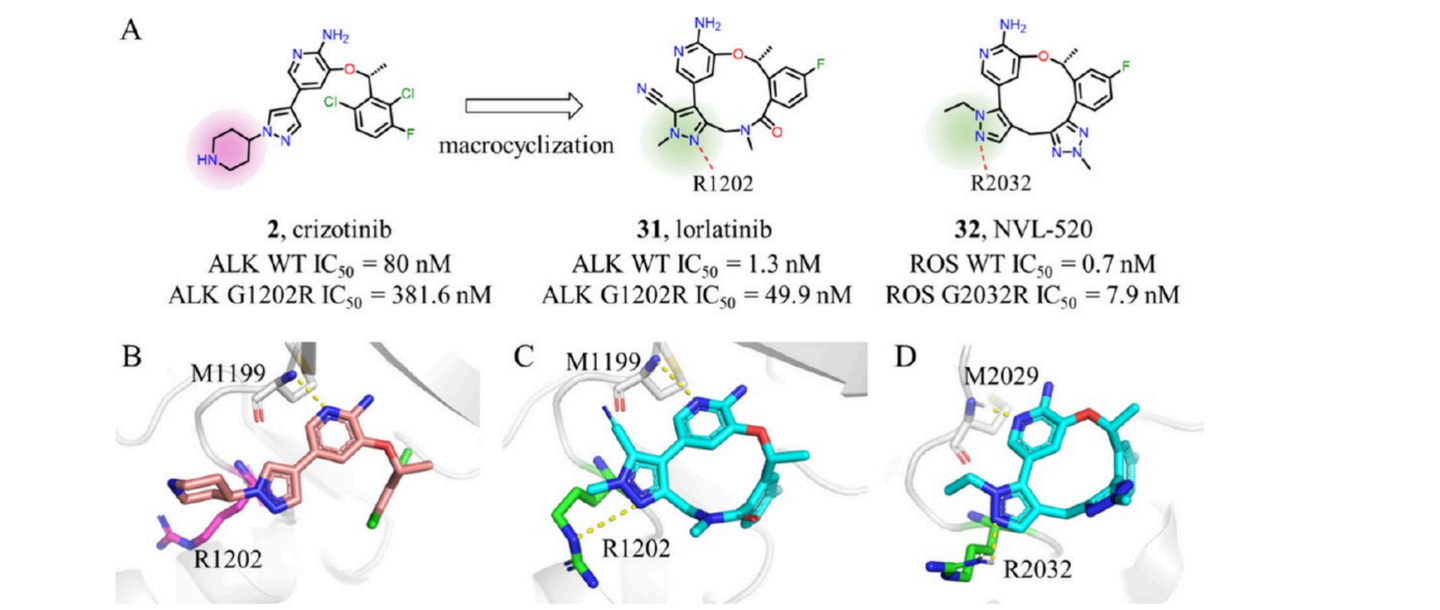
添加图片注释,不超过 140 字(可选)
allosteric inhibitor
不靶向ATP pocket,而是换一个地方,比如挨着ATP pocket的部分
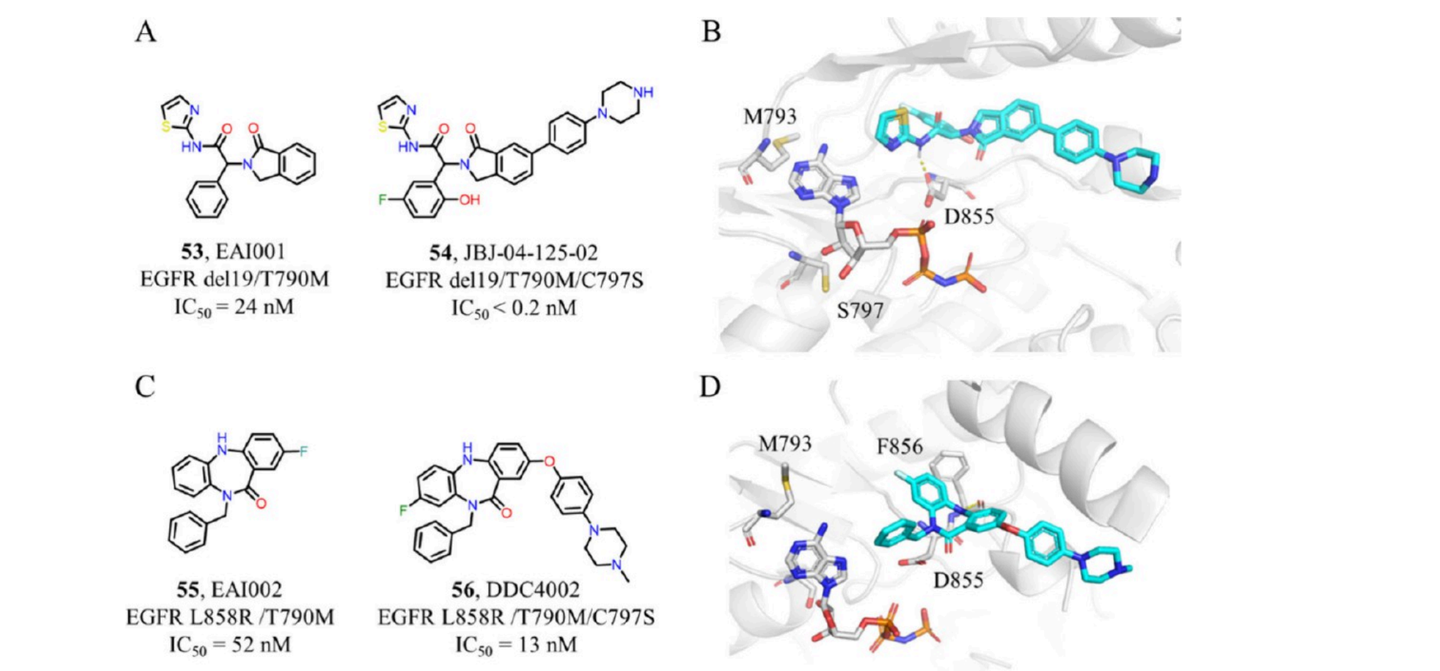
添加图片注释,不超过 140 字(可选)
kinase里substrate被磷酸化的步骤
第一步,HRD motif的D(arpartate,C-COO,图中下面位置的Asp149)会夺取-OH的H,deprotonation。
期间,DFG的D(图中上面位置的Asp167),和Asn (asparagine,-C-O-NH2,图中Asn154)会通过两个Mg2+来使得PO3磷酸的O没那么负电,(太负的话,会排斥最右侧substrate的-O,因为负负相斥)
然后最右侧substrate的O会对gamma P发起nucleophilic attack
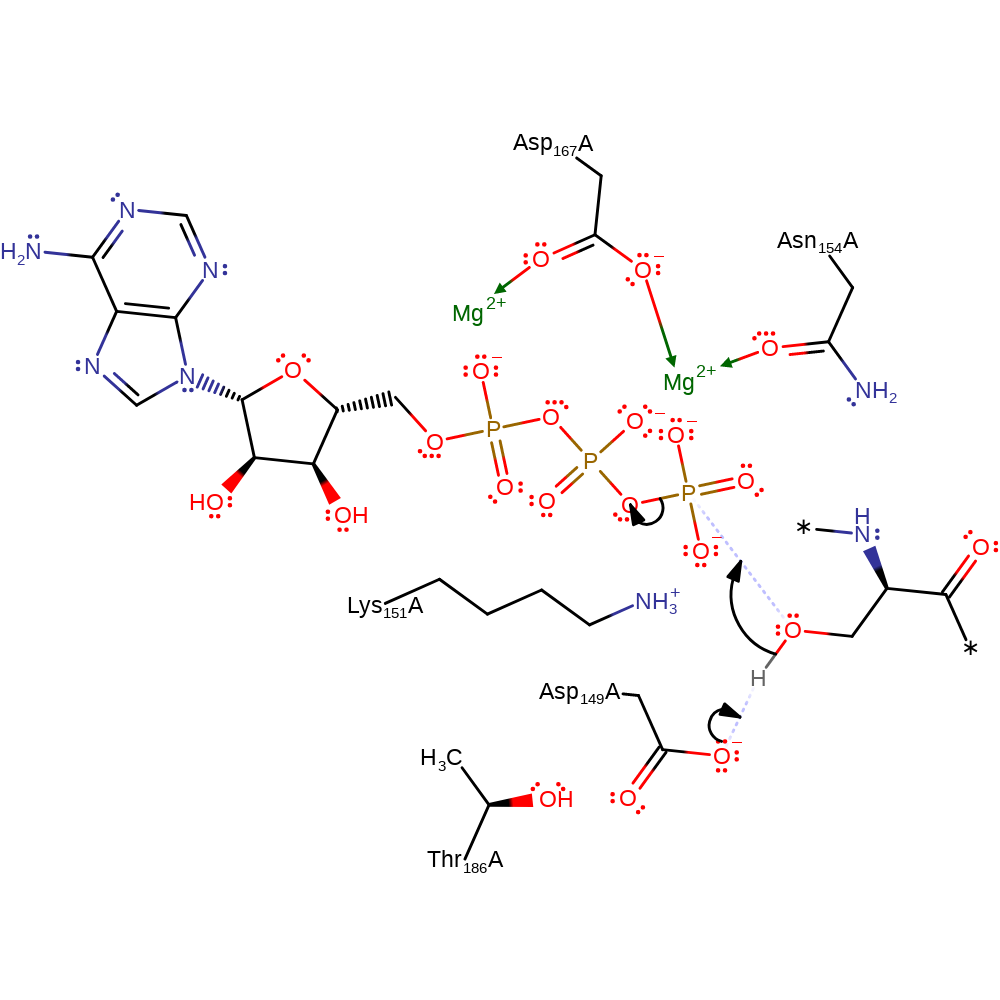
添加图片注释,不超过 140 字(可选)
然后最右侧substrate就被磷酸化了,并会重新夺取Asp149的H
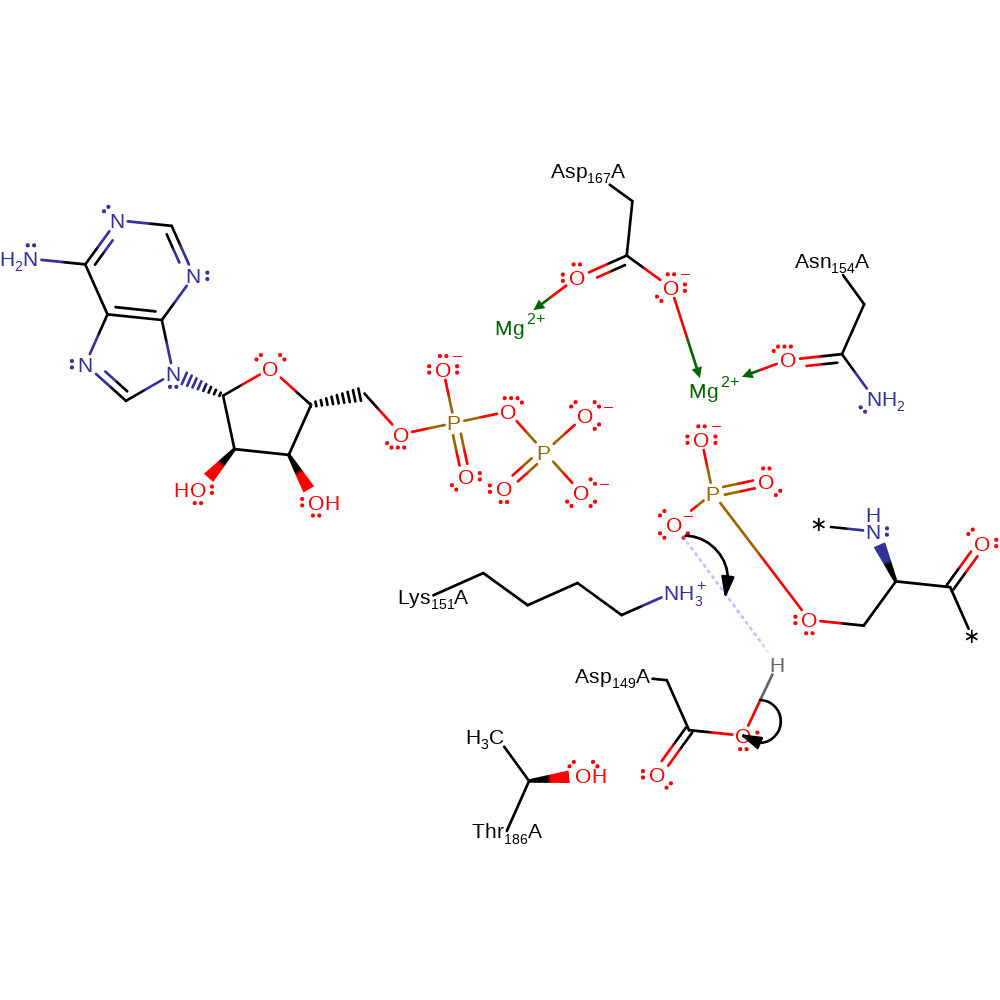
添加图片注释,不超过 140 字(可选)
最终产物
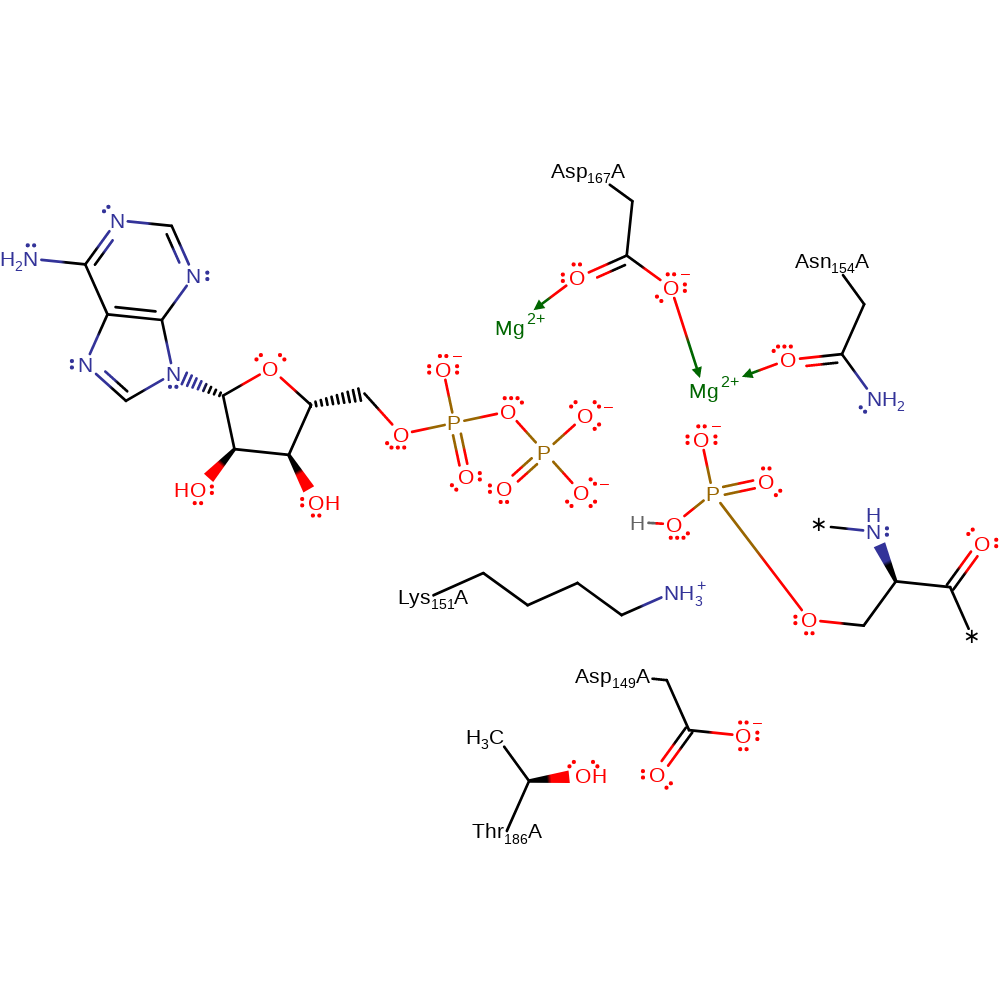
添加图片注释,不超过 140 字(可选)